Capítulo 5. La película lagrimal (II): componente acuoso, mucinas y células caliciformes
Sinopsis
Sección titulada «Sinopsis»Bajo la capa lipídica descrita en el capítulo 4 se extiende el compartimento más voluminoso y funcionalmente más versátil de la película lagrimal: la fase muco-acuosa. Este capítulo aborda el componente acuoso como disolvente y vehículo, y desarrolla con detalle el sistema mucínico que ha transformado la comprensión de la superficie ocular. Se explica el paso del modelo trilaminar clásico al concepto actual de un continuo muco-acuoso; se clasifican las mucinas —secretadas gelificantes, solubles y transmembrana— con su origen genético y su función; se describe la célula caliciforme conjuntival, su regulación y su papel; y se detalla el glicocáliz como barrera y superficie humectable, con la galectina-3 como elemento estabilizador. Por último, se analizan las alteraciones mucínicas y la pérdida de células caliciformes en el ojo seco, que enlazan con los capítulos de inflamación (capítulo 22) y de daño de la superficie (capítulo 24). El sistema mucínico ha pasado de ser un detalle histológico a constituir una diana diagnóstica y terapéutica de primer orden.
Objetivos de aprendizaje
Sección titulada «Objetivos de aprendizaje»Al finalizar este capítulo, el lector será capaz de:
- Describir la fase acuosa como compartimento de la película lagrimal y su relación con la osmolaridad.
- Contrastar el modelo trilaminar clásico con el concepto actual de continuo muco-acuoso.
- Clasificar las mucinas de la superficie ocular según su tipo, origen y función.
- Explicar la biología y la regulación de la célula caliciforme conjuntival.
- Interpretar la función del glicocáliz como barrera y sustrato humectable de la superficie.
- Relacionar la pérdida de células caliciformes y el déficit mucínico con la fisiopatología del ojo seco.
Introducción
Sección titulada «Introducción»La imagen tradicional de la película lagrimal como tres capas apiladas —lipídica, acuosa y mucínica— ha sido sustituida por la de un sistema más sutil, en el que el agua y las mucinas forman un continuo indivisible. Esta revisión conceptual no es un tecnicismo: reconocer que la fase acuosa y el sistema mucínico son funcionalmente inseparables permite entender por qué un déficit acuoso acaba dañando a las células caliciformes, y por qué la estabilidad de toda la película depende de la humectabilidad que las mucinas confieren al epitelio.¹
El componente acuoso, secretado por la glándula lagrimal cuyo estudio se abordó en el capítulo 2, es el disolvente que vehicula electrolitos, proteínas y metabolitos, y el medio en el que se dispersa el gel de mucinas. Las mucinas, por su parte, son las glicoproteínas que hacen humectable una superficie epitelial que de otro modo sería hidrófoba, y que constituyen la primera línea de defensa física y química de la superficie ocular. Su estudio ha experimentado un avance notable en las últimas dos décadas, hasta el punto de que hoy se reconsidera el papel central de las mucinas en el ojo seco y en las enfermedades de la superficie ocular.²,³
Este capítulo describe primero la fase acuosa como compartimento y el concepto de continuo muco-acuoso; después, la clasificación de las mucinas y la biología de las células caliciformes que producen la principal mucina gelificante; a continuación, el glicocáliz y las mucinas transmembrana; y, por último, las funciones integradas del sistema mucínico y sus alteraciones en el ojo seco. Con ello se completa, junto con el capítulo 4, la descripción de la película lagrimal como producto de la unidad funcional lagrimal.
5.1 La fase acuosa como compartimento
Sección titulada «5.1 La fase acuosa como compartimento»La película lagrimal precorneal es una estructura ultrafina, de alrededor de 3 µm de espesor total en el ojo abierto, cuyo componente acuoso constituye el mayor de sus volúmenes.¹ El volumen basal de lágrima se cifra en unos 6-7 µL, con una tasa de renovación —el flujo lagrimal o tear turnover— próxima al 16 % por minuto, parámetros que se desarrollan desde la perspectiva dinámica en el capítulo 6.¹ Conviene subrayar que la fase acuosa no es una capa pura apilada sobre las demás, sino el disolvente y el vehículo de electrolitos, proteínas solubles, metabolitos y del propio gel de mucinas; aporta oxígeno y nutrientes al epitelio avascular, ejerce un arrastre mecánico de partículas y patógenos y contribuye a la defensa antimicrobiana.¹
El parámetro que mejor sintetiza el estado de la fase acuosa, y el más relevante en el ojo seco, es la osmolaridad. En condiciones normales, la osmolaridad de la lágrima se sitúa en torno a 300-302 mOsm/L; el umbral diagnóstico de hiperosmolaridad en el ojo seco se establece en un valor igual o superior a 308 mOsm/L, o bien en una diferencia interocular superior a 8 mOsm/L, marcadores centrales del círculo vicioso de la enfermedad.¹,² La hiperosmolaridad es, en efecto, el mecanismo nuclear que desencadena la inflamación de la superficie, cuestión que se desarrolla en los capítulos 20 y 22. Las proteínas solubles principales de la fase acuosa —lisozima, lactoferrina, lipocalina lagrimal, inmunoglobulina A secretora y albúmina, cuyo detalle se ofreció en el capítulo 2— se acompañan de una única mucina propiamente soluble, la MUC7.¹ La lección esencial de este epígrafe es que los compartimentos acuoso y mucínico son inseparables: un déficit acuoso concentra los solutos, eleva la osmolaridad y daña a las células caliciformes, generando un déficit mucínico secundario que agrava la inestabilidad.¹,²
5.2 El continuo muco-acuoso
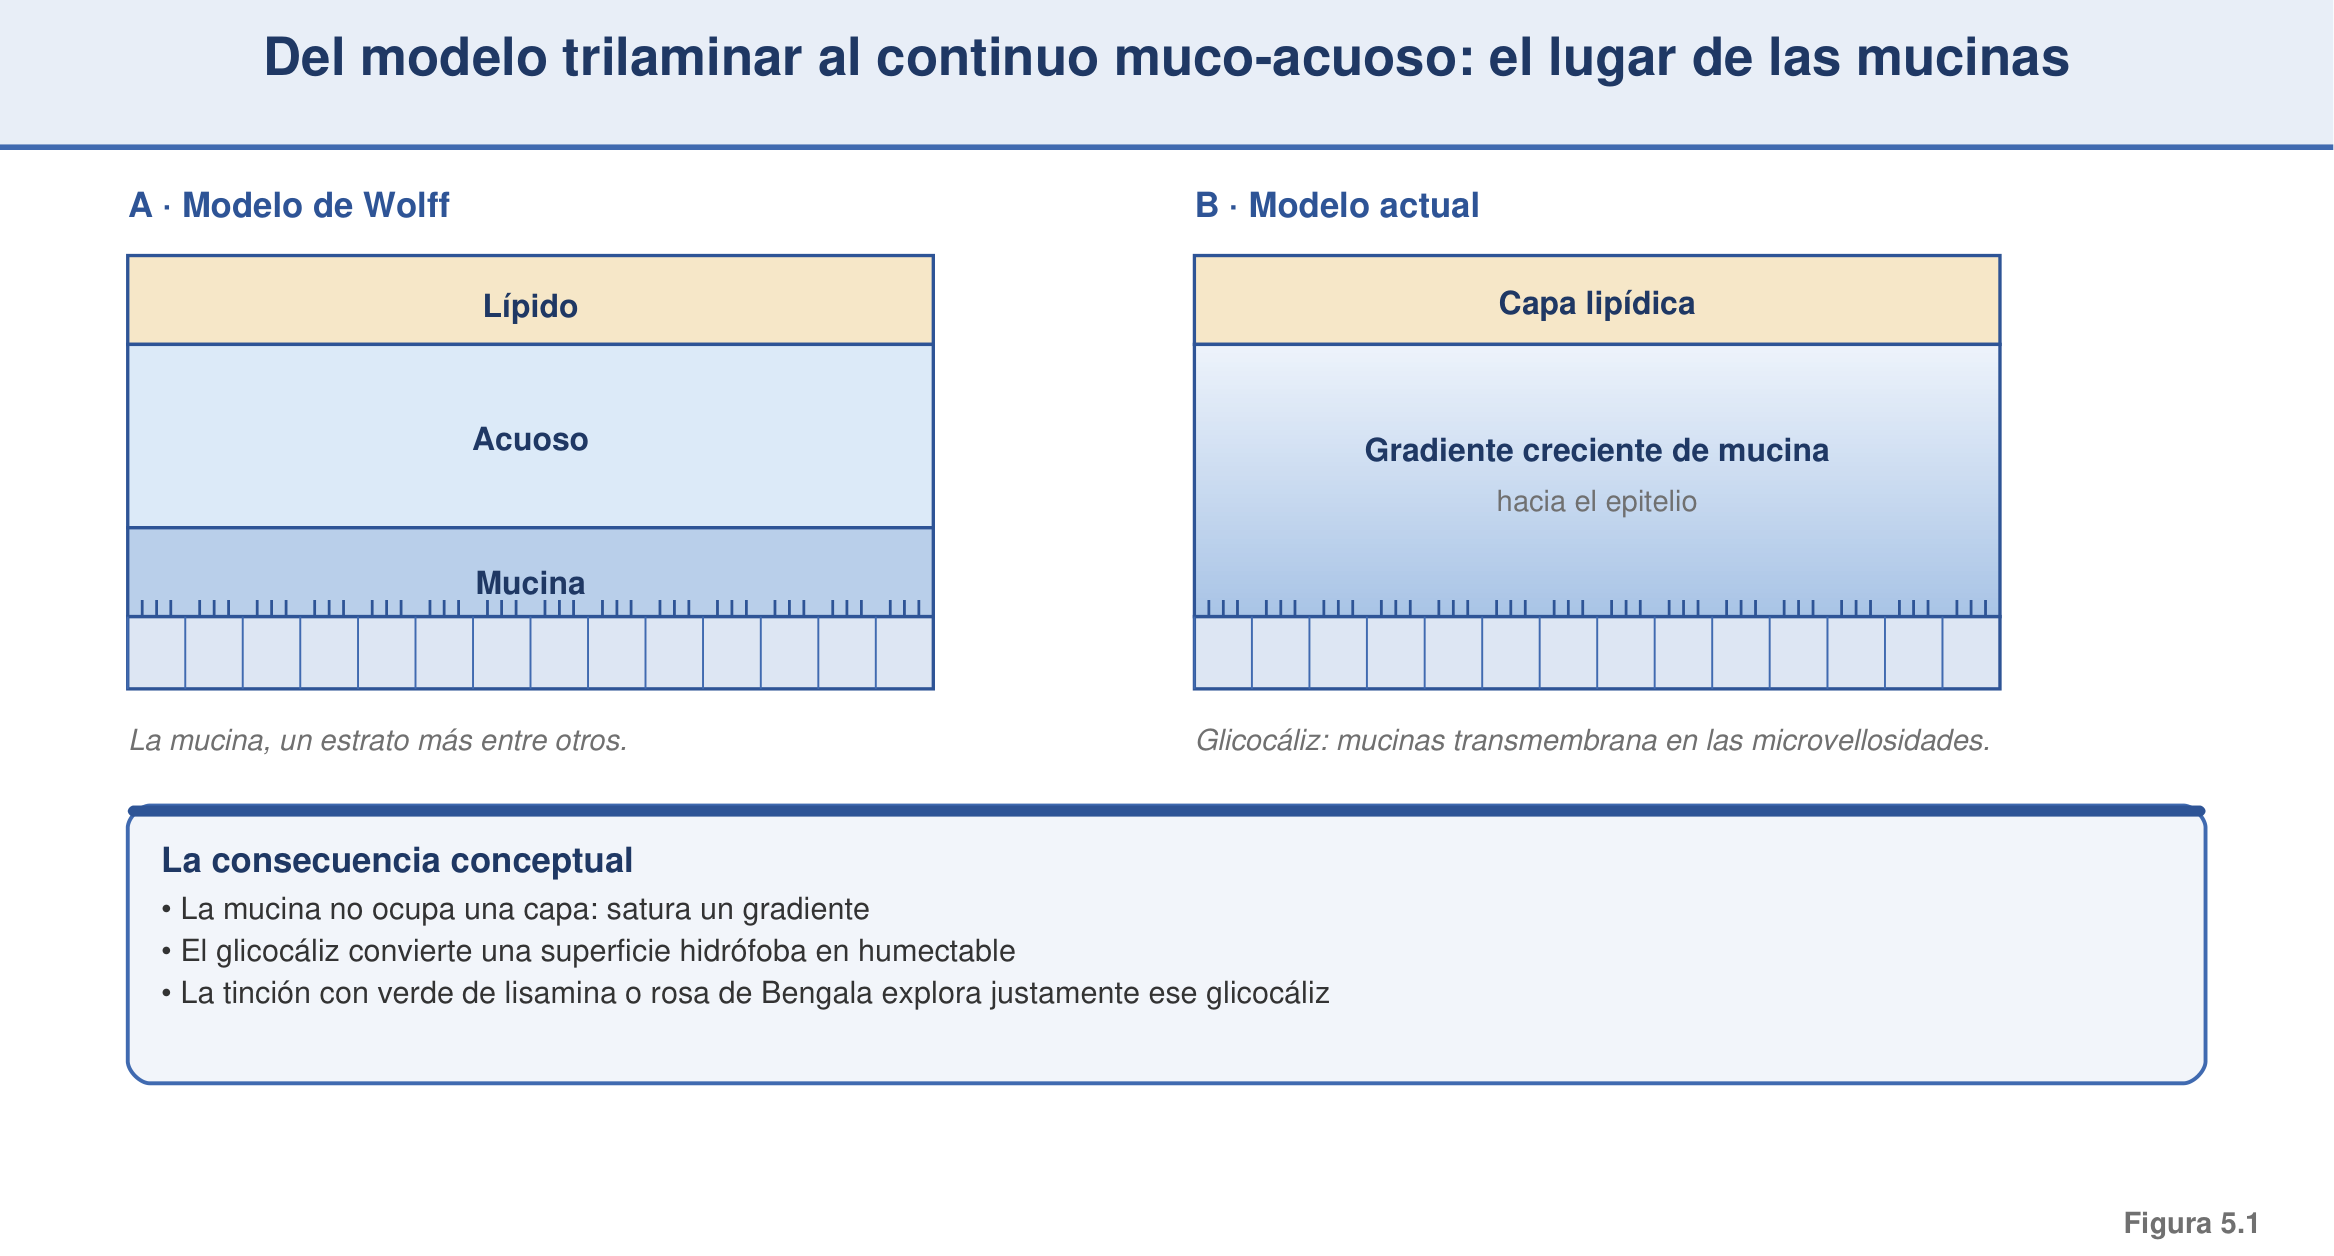
Sección titulada «5.2 El continuo muco-acuoso»El modelo trilaminar de Wolff, que representaba la película como tres estratos discretos —lipídico, acuoso y mucínico—, ha quedado superado. El concepto vigente, consolidado en el informe sobre película lagrimal del TFOS DEWS II, es el de un gradiente muco-acuoso continuo: una fase acuosa cargada de mucinas cuya concentración aumenta de forma progresiva desde la interfase con la capa lipídica hasta el epitelio, sin una frontera neta entre lo «acuoso» y lo «mucínico».¹,³ En el fondo de ese gradiente, las mucinas transmembrana ancladas al epitelio forman el glicocáliz, que se entreteje con las mucinas secretadas dispersas en la fase acuosa.¹
De este modelo se derivan dos compartimentos mucínicos complementarios. El primero está constituido por las mucinas secretadas, que forman el gel: la mucina gelificante MUC5AC, producida por las células caliciformes, y la pequeña mucina soluble MUC7. El segundo lo componen las mucinas transmembrana —MUC1, MUC4 y MUC16—, ancladas a la membrana apical del epitelio, que constituyen el glicocáliz.⁴ Esta arquitectura explica la estabilidad de la película: la fase acuosa se sostiene sobre una superficie que el glicocáliz hace humectable, y la capa lipídica reposa a su vez sobre el gel muco-acuoso. Ningún compartimento funciona de forma independiente, y la alteración de cualquiera de ellos compromete la estabilidad del conjunto.¹
5.3 Las mucinas: clasificación, estructura y genes
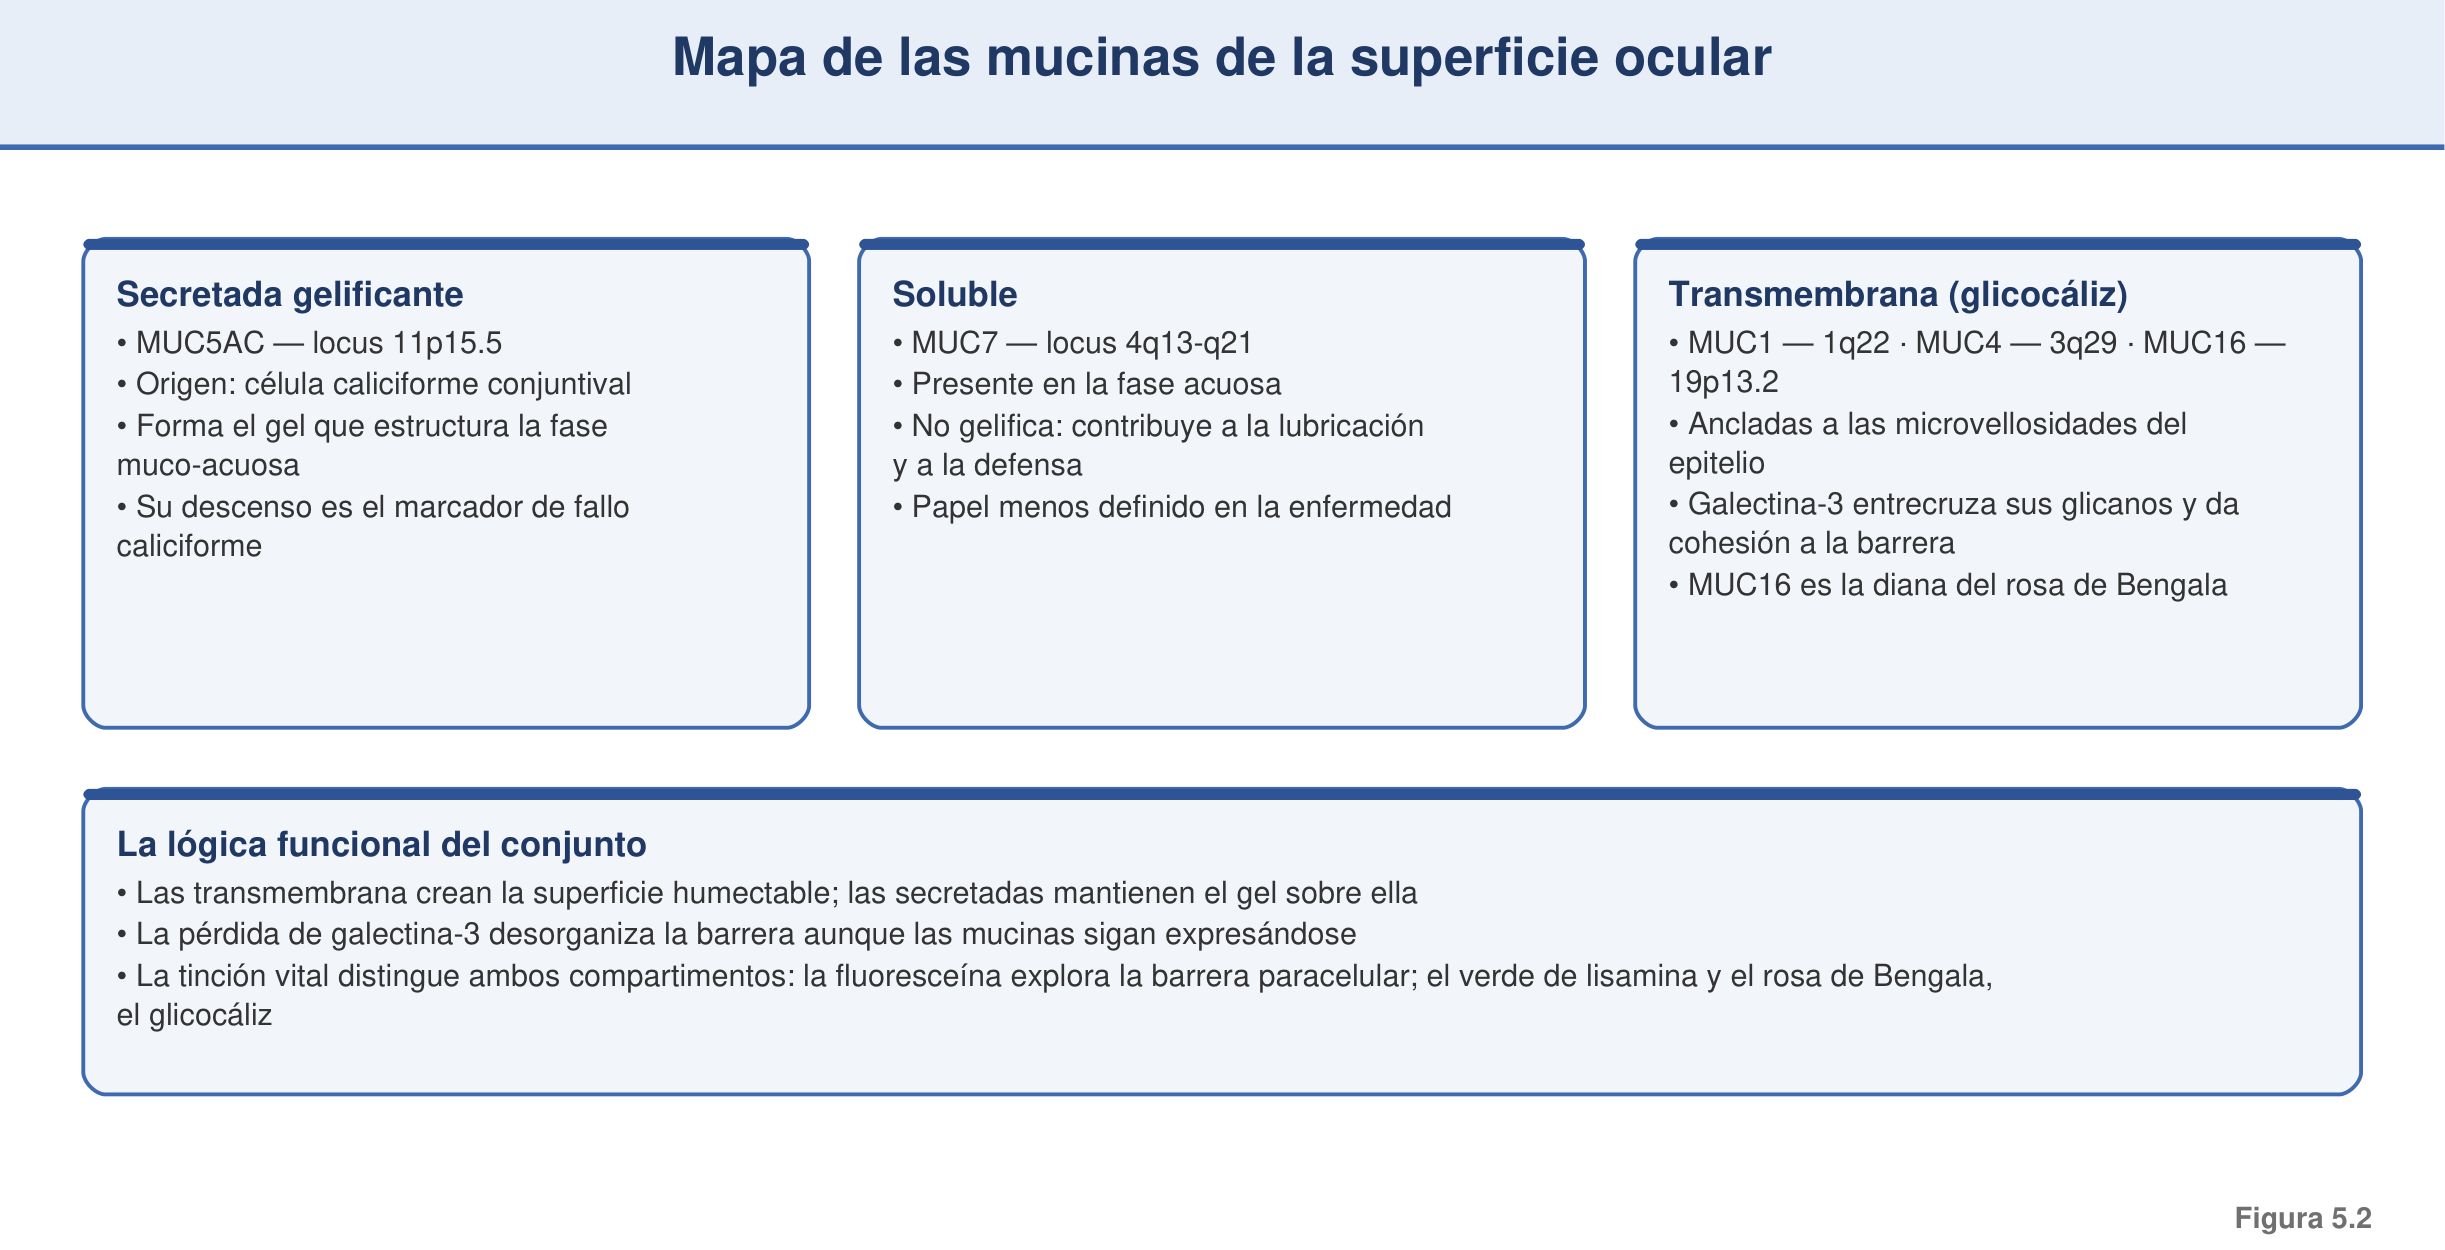
Sección titulada «5.3 Las mucinas: clasificación, estructura y genes»Las mucinas son glicoproteínas de alto peso molecular caracterizadas por dominios ricos en prolina, treonina y serina densamente O-glicosilados en repeticiones en tándem; la fracción glucídica puede representar más del 50-80 % de su masa, lo que les confiere su carácter hidrófilo y sus propiedades de gel.⁴ En la superficie ocular se distinguen tres categorías funcionales.
Las mucinas secretadas gelificantes están representadas de forma dominante por la MUC5AC, producto casi exclusivo de las células caliciformes conjuntivales; su gen se localiza en el locus 11p15.5, en un clúster con otras mucinas gelificantes, y forma multímeros unidos por puentes disulfuro que dotan al gel de su viscoelasticidad.⁴,⁵ La mucina soluble es la MUC7, una molécula pequeña, monomérica y no gelificante, codificada en 4q13-q21 y presente en pequeña cantidad en la lágrima.⁶ Por último, las mucinas transmembrana del glicocáliz comprenden la MUC1 (gen 1q22), ubicua en el ápice de córnea y conjuntiva; la MUC4 (gen 3q29), de predominio conjuntival; y la MUC16 (gen 19p13.2), la mucina de mayor tamaño —cercana a los 22.000 aminoácidos—, que se proyecta desde las microvellosidades y constituye el componente estructural clave de la barrera del glicocáliz corneal.⁵,⁷ Un hallazgo relevante ha sido la constatación de que las propias células caliciformes expresan también MUC16 asociado a membrana, y no solo la mucina gelificante que las caracteriza.⁴
5.4 Células caliciformes conjuntivales
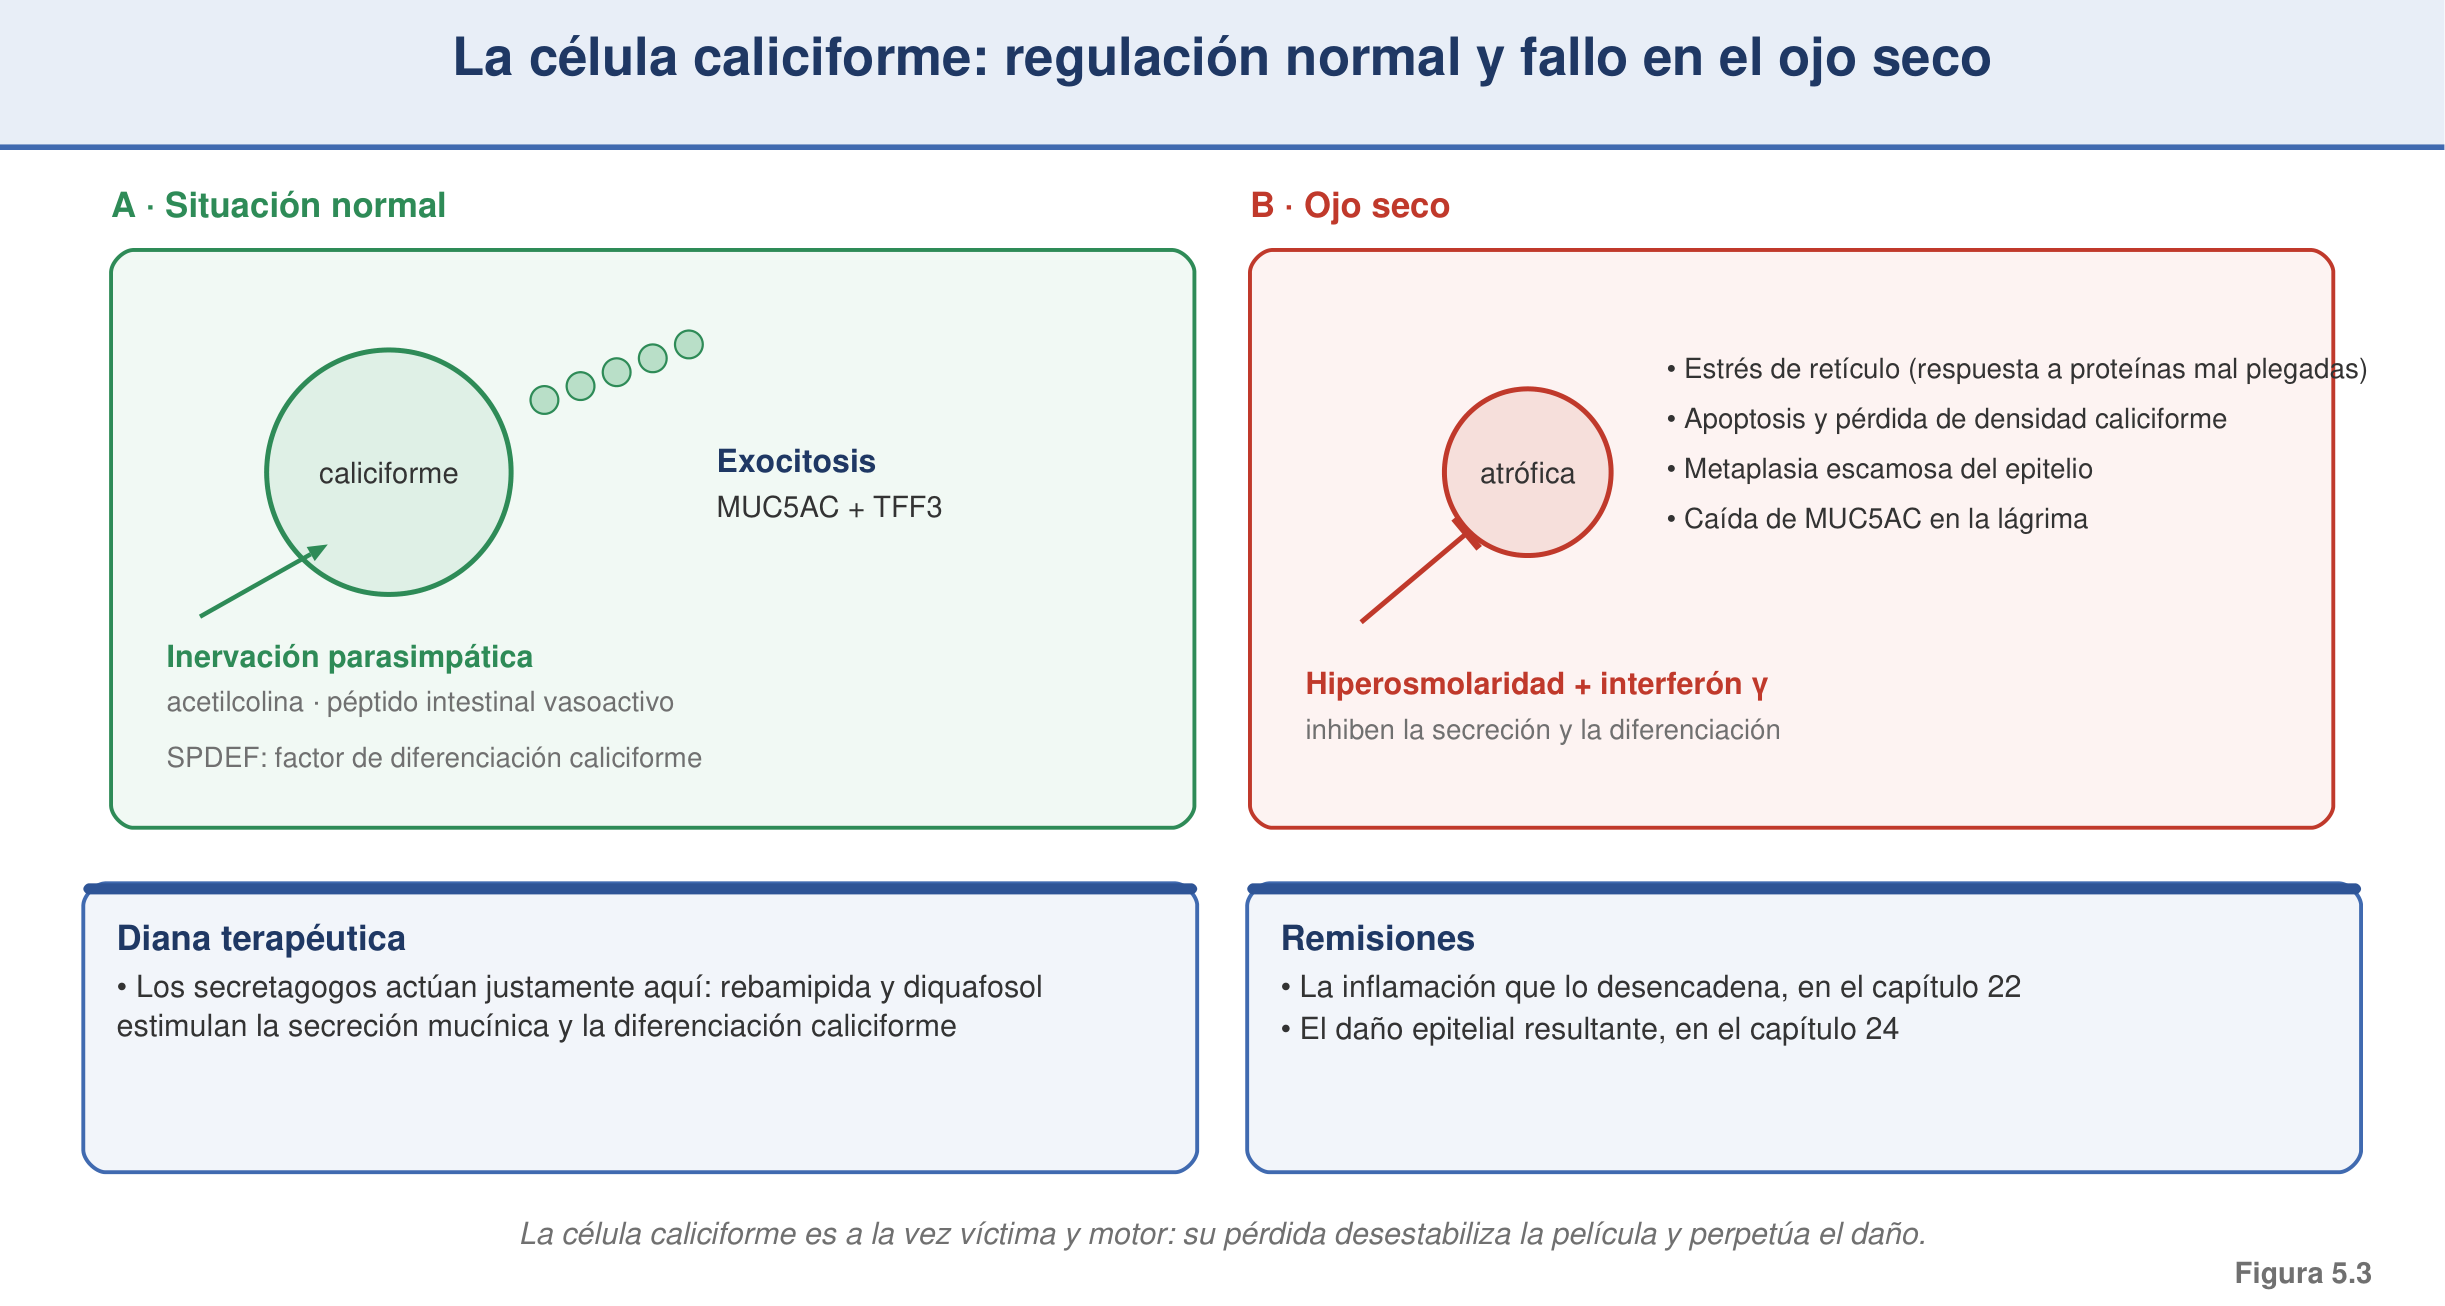
Sección titulada «5.4 Células caliciformes conjuntivales»Las células caliciformes son las células secretoras especializadas del epitelio conjuntival y la fuente de la mucina gelificante MUC5AC. Su diferenciación depende de manera crítica del factor de transcripción SPDEF: los animales carentes de este factor no desarrollan células caliciformes y constituyen un modelo experimental de ojo seco.⁸ Su distribución en la superficie no es uniforme: la densidad es mayor en la conjuntiva bulbar nasal e inferior y en los fórnices, y menor en las regiones interpalpebrales expuestas, un patrón coherente con la mayor agresión ambiental de estas últimas.⁴
La secreción de las células caliciformes combina un componente basal o constitutivo con una secreción regulada por estímulos. El control dominante es parasimpático y colinérgico: los agonistas muscarínicos y de los receptores del factor de crecimiento epidérmico estimulan la exocitosis de MUC5AC a través del calcio intracelular, y los nervios que rodean a las caliciformes liberan acetilcolina y péptido intestinal vasoactivo.⁹ Esta secreción está finamente modulada por el entorno inflamatorio: el interferón γ inhibe la secreción, altera la respuesta a los agonistas colinérgicos e induce apoptosis y estrés del retículo endoplásmico en las células caliciformes, un mecanismo central en el ojo seco que se detalla más adelante.¹⁰ Un aspecto funcional destacable es que las células caliciformes cosecretan, junto con la MUC5AC, el péptido en trébol TFF3, que estabiliza el gel de mucinas, favorece la restitución epitelial y ejerce una acción citoprotectora sobre la superficie.¹¹
5.5 El glicocáliz y las mucinas transmembrana
Sección titulada «5.5 El glicocáliz y las mucinas transmembrana»El glicocáliz es el manto de mucinas transmembrana —MUC1, MUC4 y MUC16— que recubre las microvellosidades del epitelio apical de la córnea y la conjuntiva, y cuya columna vertebral estructural es la MUC16.⁷ Sus funciones desbordan con mucho la de un simple revestimiento. Como barrera, la MUC16 impide la penetración de patógenos y de colorantes; su pérdida o disrupción aumenta la permeabilidad epitelial y la captación de rosa de Bengala, lo que constituye la base molecular de la tinción vital que se emplea en el diagnóstico del ojo seco (capítulo 33).⁷ Como determinante de la humectabilidad, el glicocáliz, hidrófilo y polianiónico por su contenido en ácido siálico, transforma una superficie epitelial intrínsecamente hidrófoba en humectable, condición indispensable para que la fase acuosa se extienda de forma estable.¹²
La estabilidad de esta barrera depende, además, de un elemento organizador: la galectina-3, una lectina que se une de forma multivalente a los glicanos de la MUC1 y la MUC16 y entrecruza el glicocáliz, reforzándolo.¹³ Su desorganización se asocia a la pérdida de la función de barrera y se ha propuesto como biomarcador de la enfermedad de superficie.¹⁴ Las mucinas transmembrana no son, por tanto, moléculas inertes: transducen señales al interior celular, modulan la inmunidad innata —la MUC16 suprime respuestas mediadas por receptores de tipo Toll— y sus O-glicanos ejercen una acción antiadhesiva frente a las bacterias, contribuyendo a la defensa de la superficie.¹⁵
5.6 Funciones integradas de las mucinas
Sección titulada «5.6 Funciones integradas de las mucinas»Las mucinas desempeñan un conjunto de funciones interdependientes que sostienen la homeostasis de la superficie. La primera es la humectabilidad: al reducir la tensión superficial y hacer humectable el epitelio, las mucinas son la base de la estabilidad de la película y, por tanto, del tiempo de rotura lagrimal.¹⁶ La segunda es la lubricación: el gel de MUC5AC minimiza la fricción entre el párpado y el globo durante el parpadeo, de modo que su déficit eleva la fricción y participa en la fisiopatología de entidades friccionales como la epiteliopatía del borde palpebral.¹¹ La tercera es la defensa: las mucinas constituyen una barrera física y química, atrapan y aclaran patógenos y detritus con el parpadeo, y sus O-glicanos antiadhesivos y su papel en la inmunidad innata refuerzan la protección de la superficie.¹⁶ Y la cuarta es el transporte y la distribución uniforme de la fase acuosa sobre la córnea con cada parpadeo.¹
Todas estas funciones se ejercen en estrecha interacción con la capa lipídica descrita en el capítulo 4: la organización muco-acuosa proporciona el sustrato hidrófilo sobre el que se ordena la película lipídica, de manera que la alteración de cualquiera de los dos compartimentos acelera la ruptura de la película y perpetúa el círculo vicioso de la enfermedad.³ Esta interdependencia es la razón por la que el sistema mucínico ha pasado a ocupar un lugar central en la comprensión del ojo seco.
5.7 Alteraciones mucínicas y de células caliciformes en el ojo seco
Sección titulada «5.7 Alteraciones mucínicas y de células caliciformes en el ojo seco»El ojo seco cursa con alteraciones consistentes del sistema mucínico. La pérdida de células caliciformes es un hallazgo constante, tanto en las formas acuodeficientes como en las evaporativas avanzadas, y puede detectarse mediante citología de impresión, técnica que cuantifica la disminución de la densidad de caliciformes y que se ha propuesto con valor diagnóstico.² A esta pérdida se asocia la metaplasia escamosa del epitelio conjuntival, una transformación hacia un fenotipo escamoso queratinizante inducida por la desecación y la inflamación crónicas, con aumento del cociente núcleo-citoplasma. En paralelo, se produce un déficit de MUC5AC, con reducción de su expresión y de la de otras mucinas, cuyos perfiles se han propuesto como biomarcadores diagnósticos y como herramienta para distinguir el ojo seco asociado al síndrome de Sjögren.¹⁷ La hiperosmolaridad, además, reduce la expresión de las mucinas transmembrana y desorganiza el glicocáliz, lo que aumenta la captación de fluoresceína y de rosa de Bengala.³
El mecanismo que articula estas alteraciones tiene un protagonista definido: el interferón γ. El déficit acuoso eleva la concentración conjuntival de interferón γ, que inhibe la secreción de las células caliciformes, induce estrés del retículo endoplásmico con activación de la respuesta a proteínas mal plegadas, provoca apoptosis y frena la diferenciación de nuevas caliciformes.¹⁸,¹⁹ Los modelos genéticos confirman la relevancia de este eje: los animales carentes de SPDEF o de MUC5AC reproducen la inestabilidad de la película y el fenotipo de ojo seco.²⁰ Esta comprensión ha convertido al sistema mucínico en una diana terapéutica: los secretagogos mucínicos, como la rebamipida y el diquafosol, aumentan la expresión de MUC5AC y de las mucinas transmembrana y elevan la densidad de células caliciformes, lo que valida el eje mucínico como blanco farmacológico y anticipa su desarrollo en los capítulos de tratamiento.²,²¹ El vínculo con la inflamación de la superficie (capítulo 22) y con el daño epitelial (capítulo 24) queda así plenamente establecido.
Aplicación clínica
Sección titulada «Aplicación clínica»El sistema mucínico tiene una traducción clínica directa y a menudo infravalorada. La tinción vital con fluoresceína y con verde de lisamina o rosa de Bengala, pilar del diagnóstico del ojo seco (capítulo 33), explora en realidad la integridad del glicocáliz y de la barrera epitelial: la captación del colorante señala las zonas donde la MUC16 y el glicocáliz han claudicado. La citología de impresión permite objetivar la pérdida de células caliciformes y la metaplasia escamosa, y aporta información sobre la gravedad y la evolución de la enfermedad de superficie.
Desde el punto de vista terapéutico, el reconocimiento del componente mucínico justifica el uso de secretagogos como la rebamipida y el diquafosol, especialmente útiles cuando predomina la inestabilidad de la película con tiempo de rotura corto y tinción positiva pese a una producción acuosa conservada. La comprensión del papel del interferón γ y de la inflamación en la pérdida de caliciformes fundamenta, además, la estrategia antiinflamatoria en el ojo seco con componente mucínico. Un error frecuente es interpretar toda tinción corneal como un daño mecánico o tóxico, cuando a menudo refleja una disfunción de la barrera mucínica susceptible de tratamiento específico.
Controversias y lagunas de evidencia
Sección titulada «Controversias y lagunas de evidencia»La cuantificación de las mucinas y de las células caliciformes en la práctica clínica sigue siendo un reto: la citología de impresión no está estandarizada entre laboratorios, y los puntos de corte de densidad caliciforme varían según el método. El valor de los perfiles de expresión mucínica como biomarcadores diagnósticos, aunque prometedor, no se ha trasladado a una prueba de uso rutinario. Persisten incógnitas sobre la reversibilidad de la pérdida de caliciformes y sobre en qué medida los secretagogos y los antiinflamatorios recuperan la población caliciforme frente a limitarse a estimular la secreción residual. Finalmente, la relación causal precisa entre el déficit mucínico y la inestabilidad de la película, aunque sólidamente respaldada por los modelos animales, es difícil de aislar en el paciente, donde coexisten alteraciones acuosas, lipídicas y mucínicas.
Puntos clave
Sección titulada «Puntos clave»- La fase acuosa y el sistema mucínico son funcionalmente inseparables: el déficit acuoso eleva la osmolaridad y daña a las células caliciformes, generando un déficit mucínico secundario.
- El modelo trilaminar clásico ha sido sustituido por el de un continuo muco-acuoso, con un gradiente de mucinas que aumenta hacia el epitelio y culmina en el glicocáliz.
- Las mucinas se clasifican en secretadas gelificantes (MUC5AC), soluble (MUC7) y transmembrana (MUC1, MUC4, MUC16); la MUC16 es la de mayor tamaño y el eje del glicocáliz.
- Las células caliciformes producen MUC5AC bajo control parasimpático colinérgico; su diferenciación depende de SPDEF y cosecretan el péptido en trébol TFF3.
- El glicocáliz confiere humectabilidad y función de barrera; su disrupción aumenta la captación de rosa de Bengala, base molecular de la tinción vital.
- La galectina-3 entrecruza y estabiliza el glicocáliz; su desorganización se asocia a pérdida de barrera y se propone como biomarcador.
- En el ojo seco se producen pérdida de células caliciformes, metaplasia escamosa y déficit de MUC5AC, mediados en gran parte por el interferón γ.
- El sistema mucínico es una diana terapéutica: los secretagogos rebamipida y diquafosol aumentan MUC5AC y la densidad de caliciformes.
Conclusiones
Sección titulada «Conclusiones»El componente acuo-mucínico de la película lagrimal ha dejado de ser un telón de fondo para convertirse en un protagonista de la fisiopatología del ojo seco. La sustitución del modelo trilaminar por el de un continuo muco-acuoso, la caracterización molecular de las mucinas y el reconocimiento del glicocáliz como barrera y superficie humectable han revelado que buena parte de los signos clínicos del ojo seco —la tinción vital, la inestabilidad de la película, la fricción— tienen un sustrato mucínico. La célula caliciforme, cuya pérdida es un marcador constante de la enfermedad, y el interferón γ, que media esa pérdida, articulan el vínculo entre el sistema mucínico, la inflamación y el daño de la superficie. Sobre esta base se apoyan tanto la interpretación de las pruebas diagnósticas como el empleo de secretagogos y antiinflamatorios, y se completa, junto con el capítulo anterior, la descripción de la película lagrimal como producto integrado de la unidad funcional lagrimal.
Bibliografía
Sección titulada «Bibliografía»-
Willcox MDP, Argüeso P, Georgiev GA, Holopainen JM, Laurie GW, Millar TJ, et al. TFOS DEWS II Tear Film Report. Ocul Surf. 2017;15(3):366-403. PMID: 28736338 · DOI: 10.1016/j.jtos.2017.03.006
-
Stapleton F, Argüeso P, Asbell P, Azar D, Bosworth C, Chen W, et al. TFOS DEWS III: Digest. Am J Ophthalmol. 2025;279:451-553. Corrigendum en: Am J Ophthalmol. 2026;288:350-1. PMID: 40472874 · DOI: 10.1016/j.ajo.2025.05.040
-
Baudouin C, Rolando M, Benitez Del Castillo JM, Messmer EM, Figueiredo FC, Irkec M, et al. Reconsidering the central role of mucins in dry eye and ocular surface diseases. Prog Retin Eye Res. 2019;71:68-87. PMID: 30471351 · DOI: 10.1016/j.preteyeres.2018.11.007
-
Gipson IK. Goblet cells of the conjunctiva: a review of recent findings. Prog Retin Eye Res. 2016;54:49-63. PMID: 27091323 · DOI: 10.1016/j.preteyeres.2016.04.005
-
Gipson IK, Hori Y, Argüeso P. Character of ocular surface mucins and their alteration in dry eye disease [distribution of mucins at the ocular surface]. Exp Eye Res. 2004;78(3):379-388. PMID: 15106916 · DOI: 10.1016/s0014-4835(03)00204-5
-
Portal C, Gouyer V, Gottrand F, Desseyn JL. Ocular mucins in dry eye disease. Exp Eye Res. 2019;186:107724. PMID: 31325452 · DOI: 10.1016/j.exer.2019.107724
-
Blalock TD, Spurr-Michaud SJ, Tisdale AS, Heimer SR, Gilmore MS, Ramesh V, et al. Functions of MUC16 in corneal epithelial cells. Invest Ophthalmol Vis Sci. 2007;48(10):4509-4518. PMID: 17898272 · DOI: 10.1167/iovs.07-0430
-
Marko CK, Menon BB, Chen G, Whitsett JA, Clevers H, Gipson IK. Spdef null mice lack conjunctival goblet cells and provide a model of dry eye. Am J Pathol. 2013;183(1):35-48. PMID: 23665202 · DOI: 10.1016/j.ajpath.2013.03.017
-
Dartt DA. Control of mucin production by ocular surface epithelial cells: a targetable approach to dry eye disease [regulation of mucin secretion]. Exp Eye Res. 2004;78(2):173-185. PMID: 14729350 · DOI: 10.1016/j.exer.2003.10.005
-
García-Posadas L, Hodges RR, Li D, Shatos MA, Storr-Paulsen T, Diebold Y, et al. Interaction of IFN-γ with cholinergic agonists to modulate rat and human goblet cell function. Mucosal Immunol. 2016;9(1):206-217. PMID: 26129651 · DOI: 10.1038/mi.2015.53
-
Hodges RR, Dartt DA. Tear film mucins: front line defenders of the ocular surface; comparison of functions and regulation. Exp Eye Res. 2013;117:62-78. PMID: 23954166 · DOI: 10.1016/j.exer.2013.07.027
-
Argüeso P. Glycobiology of the ocular surface: mucins and lectins. Jpn J Ophthalmol. 2013;57(2):150-155. PMID: 23325272 · DOI: 10.1007/s10384-012-0228-2
-
Argüeso P, Guzman-Aranguez A, Mantelli F, Cao Z, Ricciuto J, Panjwani N. Association of cell surface mucins with galectin-3 contributes to the ocular surface epithelial barrier. J Biol Chem. 2009;284(34):23037-23045. PMID: 19556244 · DOI: 10.1074/jbc.M109.033332
-
Argüeso P. Disrupted glycocalyx as a source of ocular surface biomarkers. Eye Contact Lens. 2020;46 Suppl 2:S53-S56. PMID: 31469755 · DOI: 10.1097/ICL.0000000000000653
-
Govindarajan B, Gipson IK. Membrane-tethered mucins have multiple functions on the ocular surface. Exp Eye Res. 2010;90(6):655-663. PMID: 20223235 · DOI: 10.1016/j.exer.2010.02.014
-
Mantelli F, Argüeso P. Functions of ocular surface mucins in health and disease. Curr Opin Allergy Clin Immunol. 2008;8(5):477-483. PMID: 18769205 · DOI: 10.1097/ACI.0b013e32830e6b04
-
Corrales RM, Narayanan S, Fernández I, Mayo A, Galarreta DJ, Fuentes-Páez G, et al. Ocular mucin gene expression levels as biomarkers for the diagnosis of dry eye syndrome. Invest Ophthalmol Vis Sci. 2011;52(11):8363-8369. PMID: 21931132 · DOI: 10.1167/iovs.11-7655
-
Pflugfelder SC, De Paiva CS, Moore QL, Volpe EA, Li DQ, Gumus K, et al. Aqueous tear deficiency increases conjunctival interferon-γ (IFN-γ) expression and goblet cell loss. Invest Ophthalmol Vis Sci. 2015;56(12):7545-7550. PMID: 26618646 · DOI: 10.1167/iovs.15-17627
-
Coursey TG, Tukler Henriksson J, Barbosa FL, de Paiva CS, Pflugfelder SC. Interferon-γ-induced unfolded protein response in conjunctival goblet cells as a cause of mucin deficiency in Sjögren syndrome. Am J Pathol. 2016;186(6):1547-1558. PMID: 27085137 · DOI: 10.1016/j.ajpath.2016.02.004
-
Marko CK, Tisdale AS, Spurr-Michaud S, Evans C, Gipson IK. The ocular surface phenotype of Muc5ac and Muc5b null mice. Invest Ophthalmol Vis Sci. 2014;55(1):291-300. PMID: 24327612 · DOI: 10.1167/iovs.13-13194
-
Hori Y. Secreted mucins on the ocular surface. Invest Ophthalmol Vis Sci. 2018;59(14):DES151-DES156. PMID: 30481820 · DOI: 10.1167/iovs.17-23623