Capítulo 7. Inervación y neurofisiología sensitiva de la superficie ocular
Sinopsis
Sección titulada «Sinopsis»La córnea es el tejido más densamente inervado del organismo, y esa inervación es mucho más que un sistema de alarma: regula la secreción lagrimal y el parpadeo, mantiene el trofismo del epitelio y detecta la evaporación de la lágrima. Este capítulo describe la neurofisiología sensitiva normal de la superficie ocular como fundamento para comprender su papel en el ojo seco. Se detallan la anatomía de la inervación corneal y conjuntival —del origen trigeminal al plexo subbasal y las terminaciones intraepiteliales—, los tres tipos de receptores sensitivos y los canales que los transducen, con especial atención al TRPM8 como sensor del frío y de la evaporación que gobierna el lagrimeo basal. Se exponen el arco reflejo sensitivo-secretor y sensitivo-motor, las funciones tróficas de la inervación y el concepto de córnea como tejido neurotrófico, y los métodos de estudio de la sensibilidad y de la morfología nerviosa. Por último, se introducen las alteraciones neurosensoriales del ojo seco —hiposensibilidad, hipersensibilidad y dolor neuropático—, cuyo desarrollo corresponde al capítulo 25.
Objetivos de aprendizaje
Sección titulada «Objetivos de aprendizaje»Al finalizar este capítulo, el lector será capaz de:
- Describir la anatomía de la inervación corneal, del origen trigeminal al plexo subbasal y las terminaciones intraepiteliales.
- Distinguir los tres tipos de receptores sensitivos de la superficie ocular y su función.
- Explicar el papel del canal TRPM8 en la detección de la evaporación y en el lagrimeo basal.
- Integrar el arco reflejo sensitivo-secretor y sensitivo-motor de la superficie ocular.
- Justificar el concepto de córnea como tejido neurotrófico y su relevancia clínica.
- Reconocer los métodos de estudio de la sensibilidad y de la inervación corneales.
Introducción
Sección titulada «Introducción»La superficie ocular está expuesta de forma permanente al ambiente, y su protección depende de un sistema sensitivo de una densidad y una sofisticación excepcionales. La córnea posee la mayor densidad de terminaciones nerviosas del organismo, muy superior a la de la piel, lo que explica su exquisita sensibilidad.¹ Pero la inervación de la superficie ocular no se limita a generar sensaciones de dolor: constituye el brazo aferente del arco reflejo que regula la secreción lagrimal y el parpadeo, mantiene el trofismo del epitelio corneal y, a través de los termorreceptores de frío, actúa como sensor de la evaporación de la lágrima que sostiene el lagrimeo basal.²
Esta doble condición —sensitiva y trófica— sitúa a la inervación en el centro de la fisiopatología del ojo seco. Su daño, ya sea por la propia enfermedad, por la cirugía refractiva o por la queratopatía neurotrófica, altera tanto la percepción como la regulación de la superficie, y da lugar a fenómenos como la disociación entre los signos y los síntomas o el dolor neuropático corneal. El presente capítulo describe la neurofisiología sensitiva normal; sus alteraciones patológicas —la sensibilización y el dolor crónico— se desarrollan en el capítulo 25, y sus implicaciones en la cirugía refractiva, en los capítulos 55 y 63.
El capítulo aborda sucesivamente la anatomía de la inervación, los tipos de receptores, los canales de transducción, el arco reflejo, las funciones tróficas, los métodos de estudio y, por último, una introducción a las alteraciones neurosensoriales del ojo seco. Con él se completa la descripción de la unidad funcional lagrimal iniciada en el capítulo 1, aportando su dimensión neural.
7.1 Anatomía de la inervación corneal y conjuntival
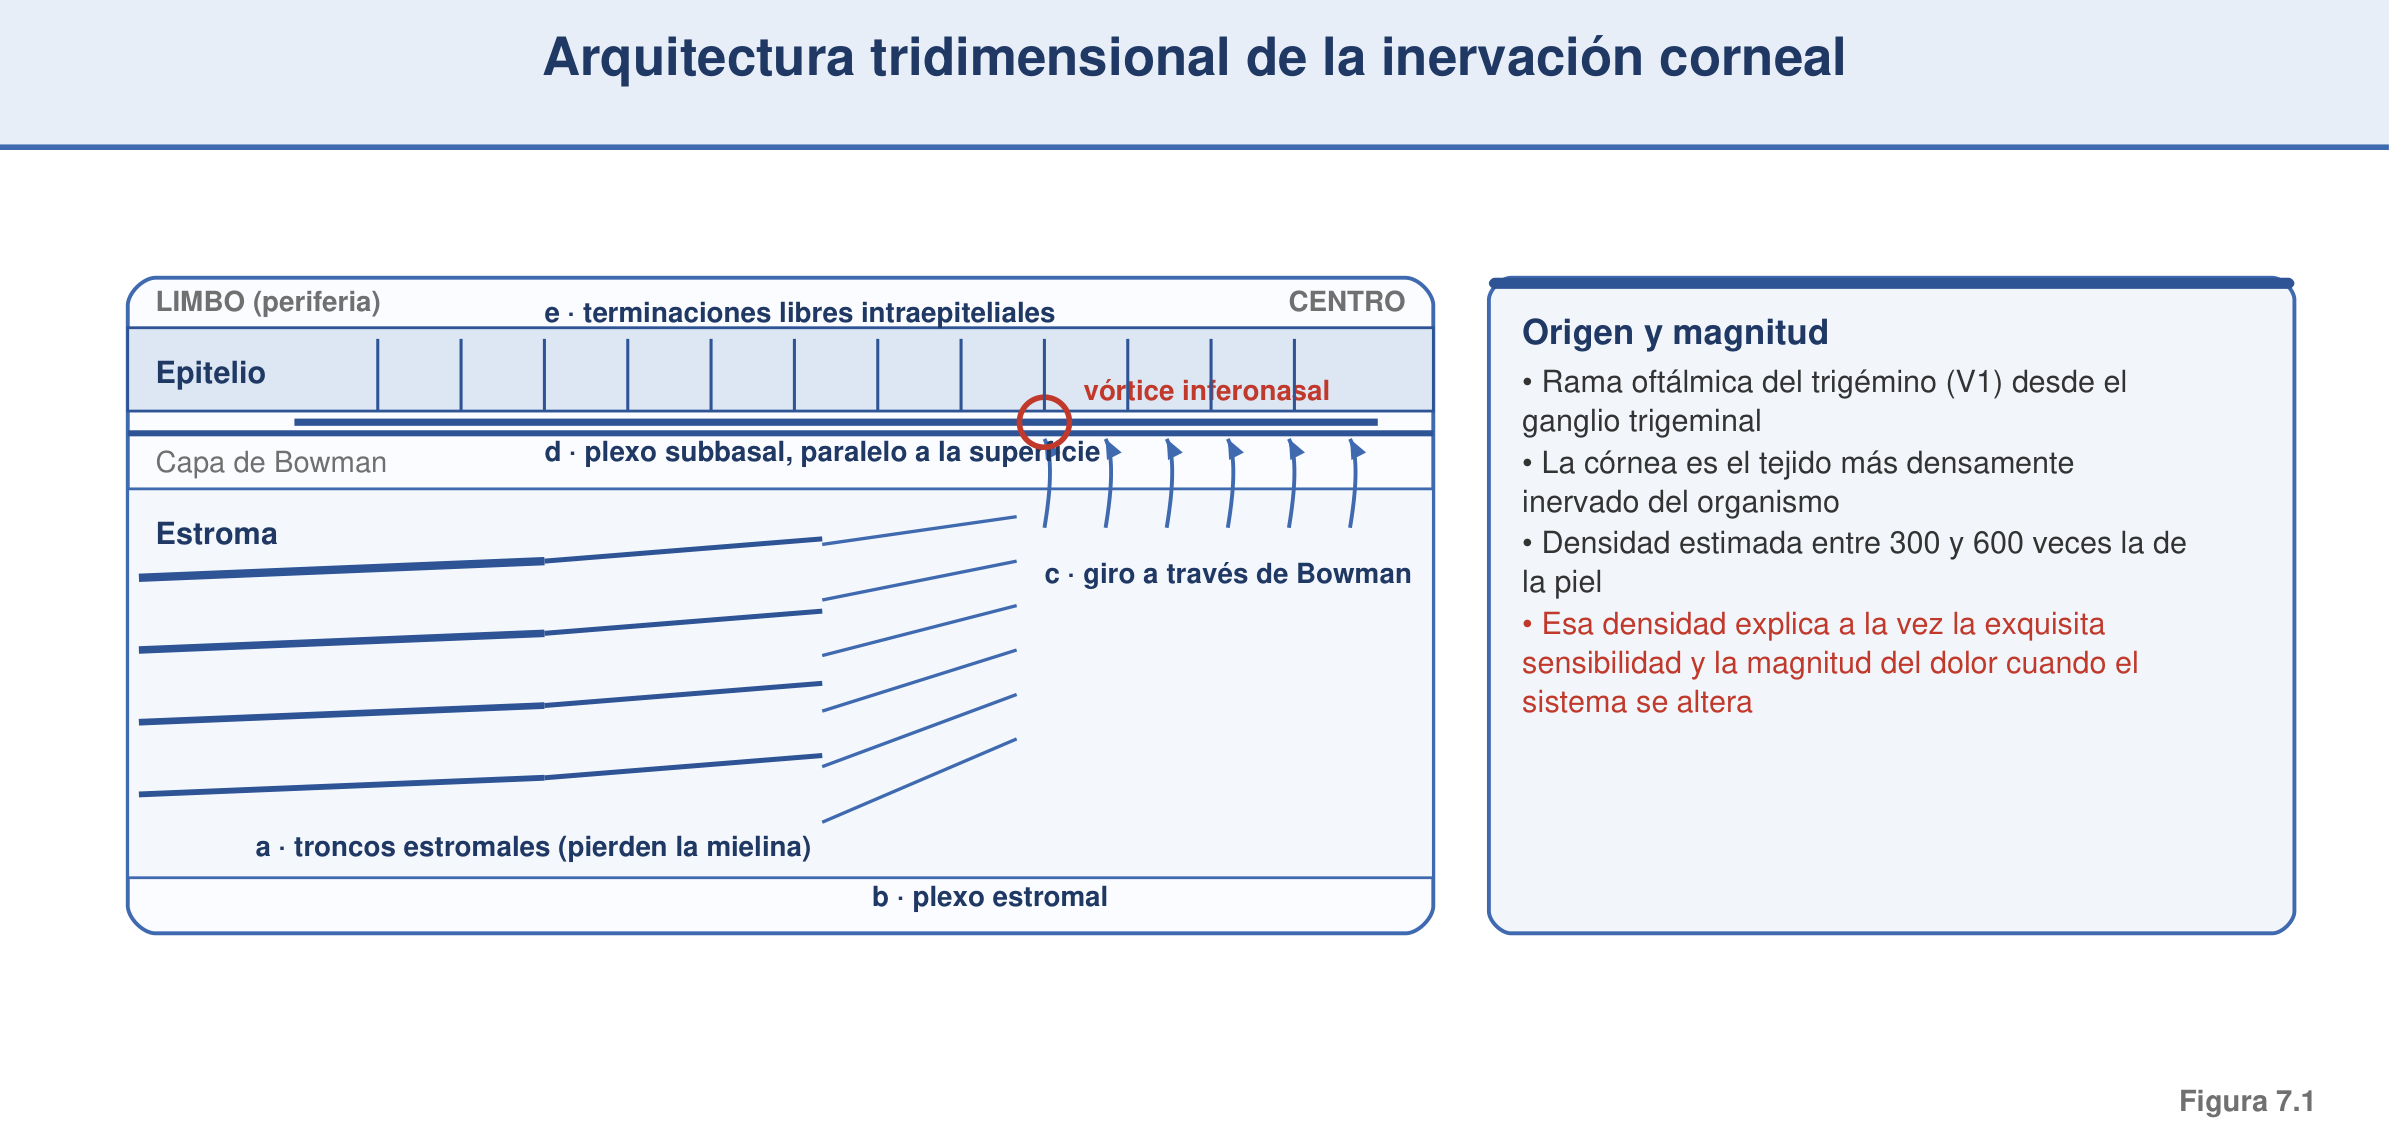
Sección titulada «7.1 Anatomía de la inervación corneal y conjuntival»La córnea es el tejido más densamente inervado del cuerpo: la densidad de sus terminaciones sensitivas es varios cientos de veces superior a la de la piel, base de su extraordinaria sensibilidad.¹ Esta inervación procede de la rama oftálmica del nervio trigémino, cuyos somas residen en el ganglio trigeminal y que alcanza el globo a través de los nervios ciliares largos; los estudios de trazado retrógrado confirman este origen sensitivo trigeminal, con contribuciones menores simpática y parasimpática.³
La organización de la inervación sigue un patrón bien definido. Varias decenas de troncos nerviosos estromales gruesos penetran radialmente por la periferia corneal a nivel del estroma medio-anterior y pierden su vaina de mielina a aproximadamente un milímetro del limbo, lo que preserva la transparencia; a partir de ahí se ramifican progresivamente formando el plexo estromal.⁴ Las fibras ascienden, atraviesan la capa de Bowman y giran para discurrir paralelas a la superficie entre Bowman y el epitelio basal, formando el denso plexo nervioso subbasal, cuyos haces convergen en un remolino o vórtice situado inferonasalmente respecto del ápex corneal.⁵ De este plexo emergen miles de terminaciones intraepiteliales libres y amielínicas que ascienden verticalmente entre las células epiteliales hasta las capas más superficiales, y que constituyen el sustrato de la nocicepción y la termorrecepción.⁶
Un aspecto de gran relevancia es que esta arquitectura no es estática. El plexo subbasal se remodela de forma continua, con una migración centrípeta del orden de 10-20 µm por día: las fibras se elongan cerca de su punto de penetración mientras sus segmentos distales se descaman con el recambio epitelial.⁷ Con el envejecimiento disminuyen la densidad subbasal e intraepitelial, aumentan la tortuosidad y la desorientación de las fibras, y se reducen la sensibilidad corneal y la regulación del lagrimeo.⁷ La conjuntiva también está inervada por el trigémino, pero con una densidad de terminaciones muy inferior a la corneal, y en ella predominan los mecanorreceptores y los nociceptores.²
7.2 Tipos de receptores sensitivos
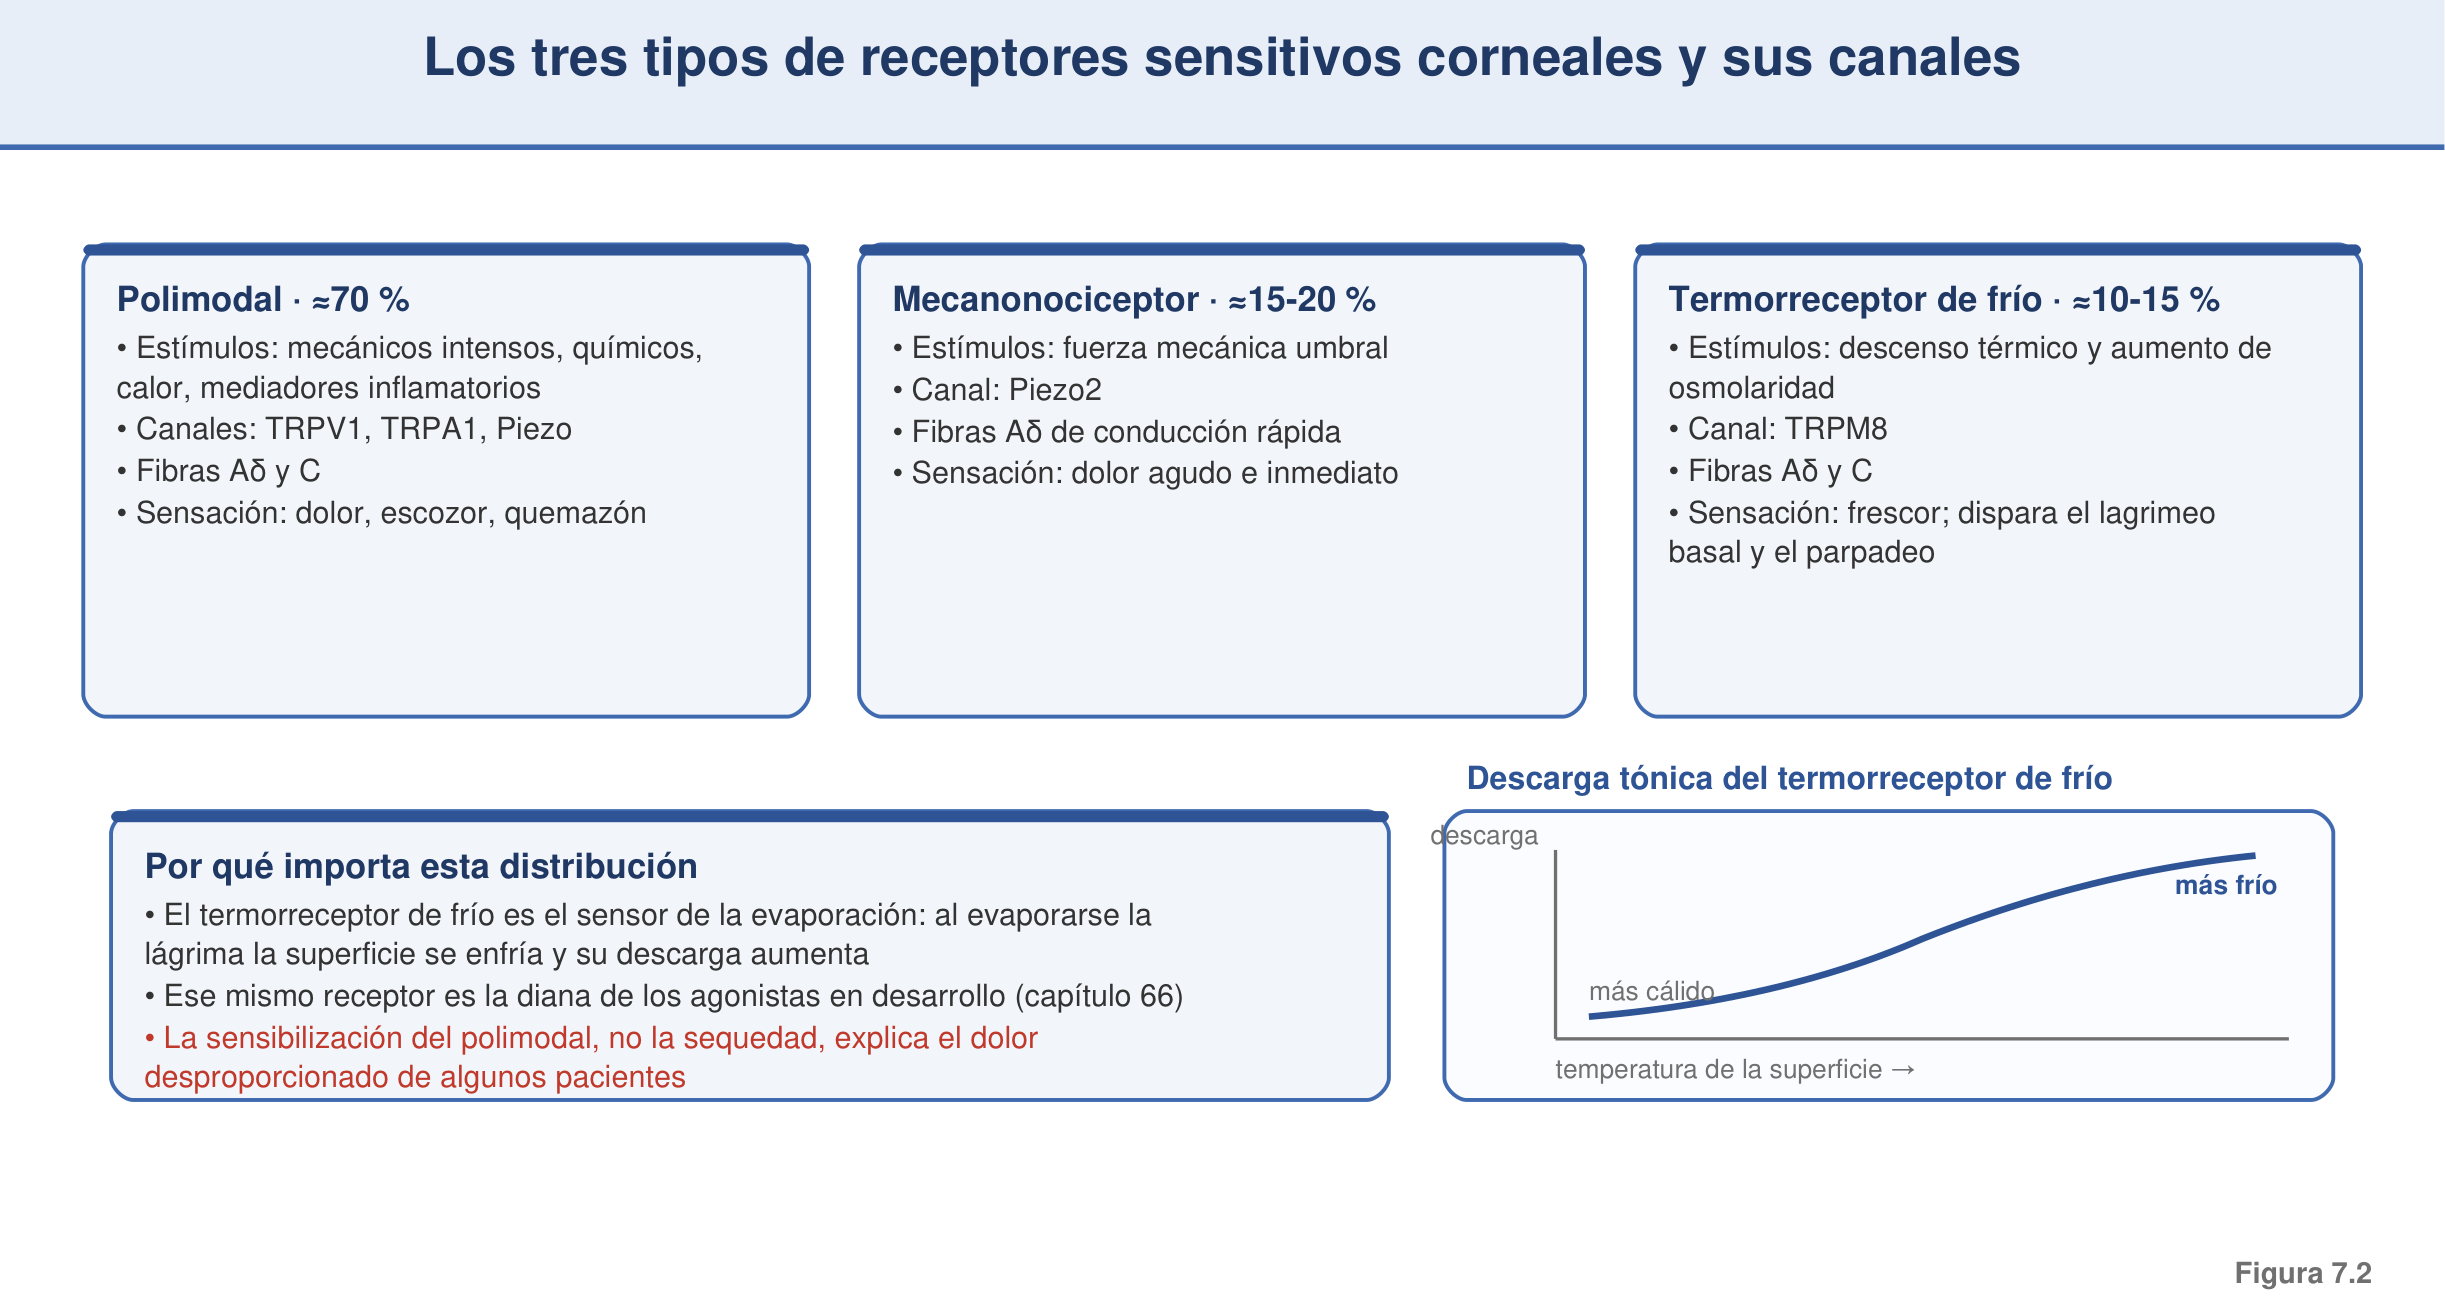
Sección titulada «7.2 Tipos de receptores sensitivos»La sensibilidad de la superficie ocular se sustenta en tres poblaciones funcionales de terminaciones nerviosas libres, caracterizadas electrofisiológicamente en modelos animales.⁸ La primera y más numerosa, alrededor del 70 %, son los nociceptores polimodales: responden a estímulos mecánicos nocivos, al calor, al frío extremo y a agentes químicos —capsaicina, ácidos, mediadores inflamatorios—, están constituidos por fibras Aδ y C, median la sensación de escozor y dolor urente y se sensibilizan con la inflamación.⁹ La segunda población, en torno al 15-20 %, son los mecanonociceptores puros, fibras Aδ de umbral alto que responden solo a fuerzas mecánicas próximas al daño y generan una sensación aguda y breve al contacto.⁸
La tercera población, el 10-15 %, la constituyen los termorreceptores de frío, funcionalmente los más singulares. Descargan de forma tónica a la temperatura basal de la superficie ocular —en torno a 33-34 °C— y aumentan su descarga ante pequeños enfriamientos, como el que produce la evaporación de la lágrima.¹⁰ Esta actividad espontánea en reposo y su capacidad de codificar la tasa de enfriamiento los convierten en el verdadero sensor de humedad de la superficie ocular, un concepto que ha transformado la comprensión del lagrimeo basal y que se desarrolla en el epígrafe siguiente.¹¹
7.3 Canales de transducción: el frío y la evaporación como estímulo
Sección titulada «7.3 Canales de transducción: el frío y la evaporación como estímulo»La transducción de estos estímulos depende de canales iónicos específicos. El protagonista del capítulo es el TRPM8 (transient receptor potential melastatin 8), el canal receptor del frío y del mentol identificado en 2002, que constituye el transductor molecular de los termorreceptores de frío corneales.¹² Su activación por descensos térmicos leves —los que provoca la evaporación lagrimal— desencadena la descarga que estimula la secreción lagrimal. El hallazgo decisivo fue la demostración, en modelos murinos, de que la humedad de la superficie ocular está regulada por termorreceptores de frío dependientes de TRPM8: su ablación reduce el lagrimeo basal.¹¹ El TRPM8 actúa, además, como un osmosensor neuronal que regula el parpadeo, y su alteración con el envejecimiento contribuye a la disminución del lagrimeo.¹³,¹⁴ La consecuencia conceptual es de primer orden: la evaporación de la lágrima es el estímulo fisiológico que, a través del enfriamiento y del TRPM8, sostiene el lagrimeo y el parpadeo basales.
Otros canales completan el repertorio de transducción. El TRPV1, receptor de la capsaicina, del calor nocivo, del pH bajo y de la hiperosmolaridad, y el TRPA1, sensible a irritantes químicos y a especies reactivas, se expresan en los nociceptores polimodales y transducen el calor, los protones y los agentes proinflamatorios; el TRPV1 es especialmente relevante en la respuesta a la hiperosmolaridad lagrimal, un vínculo que se retomará en el capítulo 25.¹⁵ Los canales Piezo, mecanotransductores activados por fuerza mecánica, son candidatos a mediar la mecanosensibilidad de la superficie ocular, un campo de investigación emergente.¹⁶ Y los canales de sodio dependientes de voltaje determinan la excitabilidad y la propagación del impulso, cuya alteración subyace a la hiperexcitabilidad patológica del dolor neuropático.⁷
7.4 El arco reflejo sensitivo-secretor y sensitivo-motor
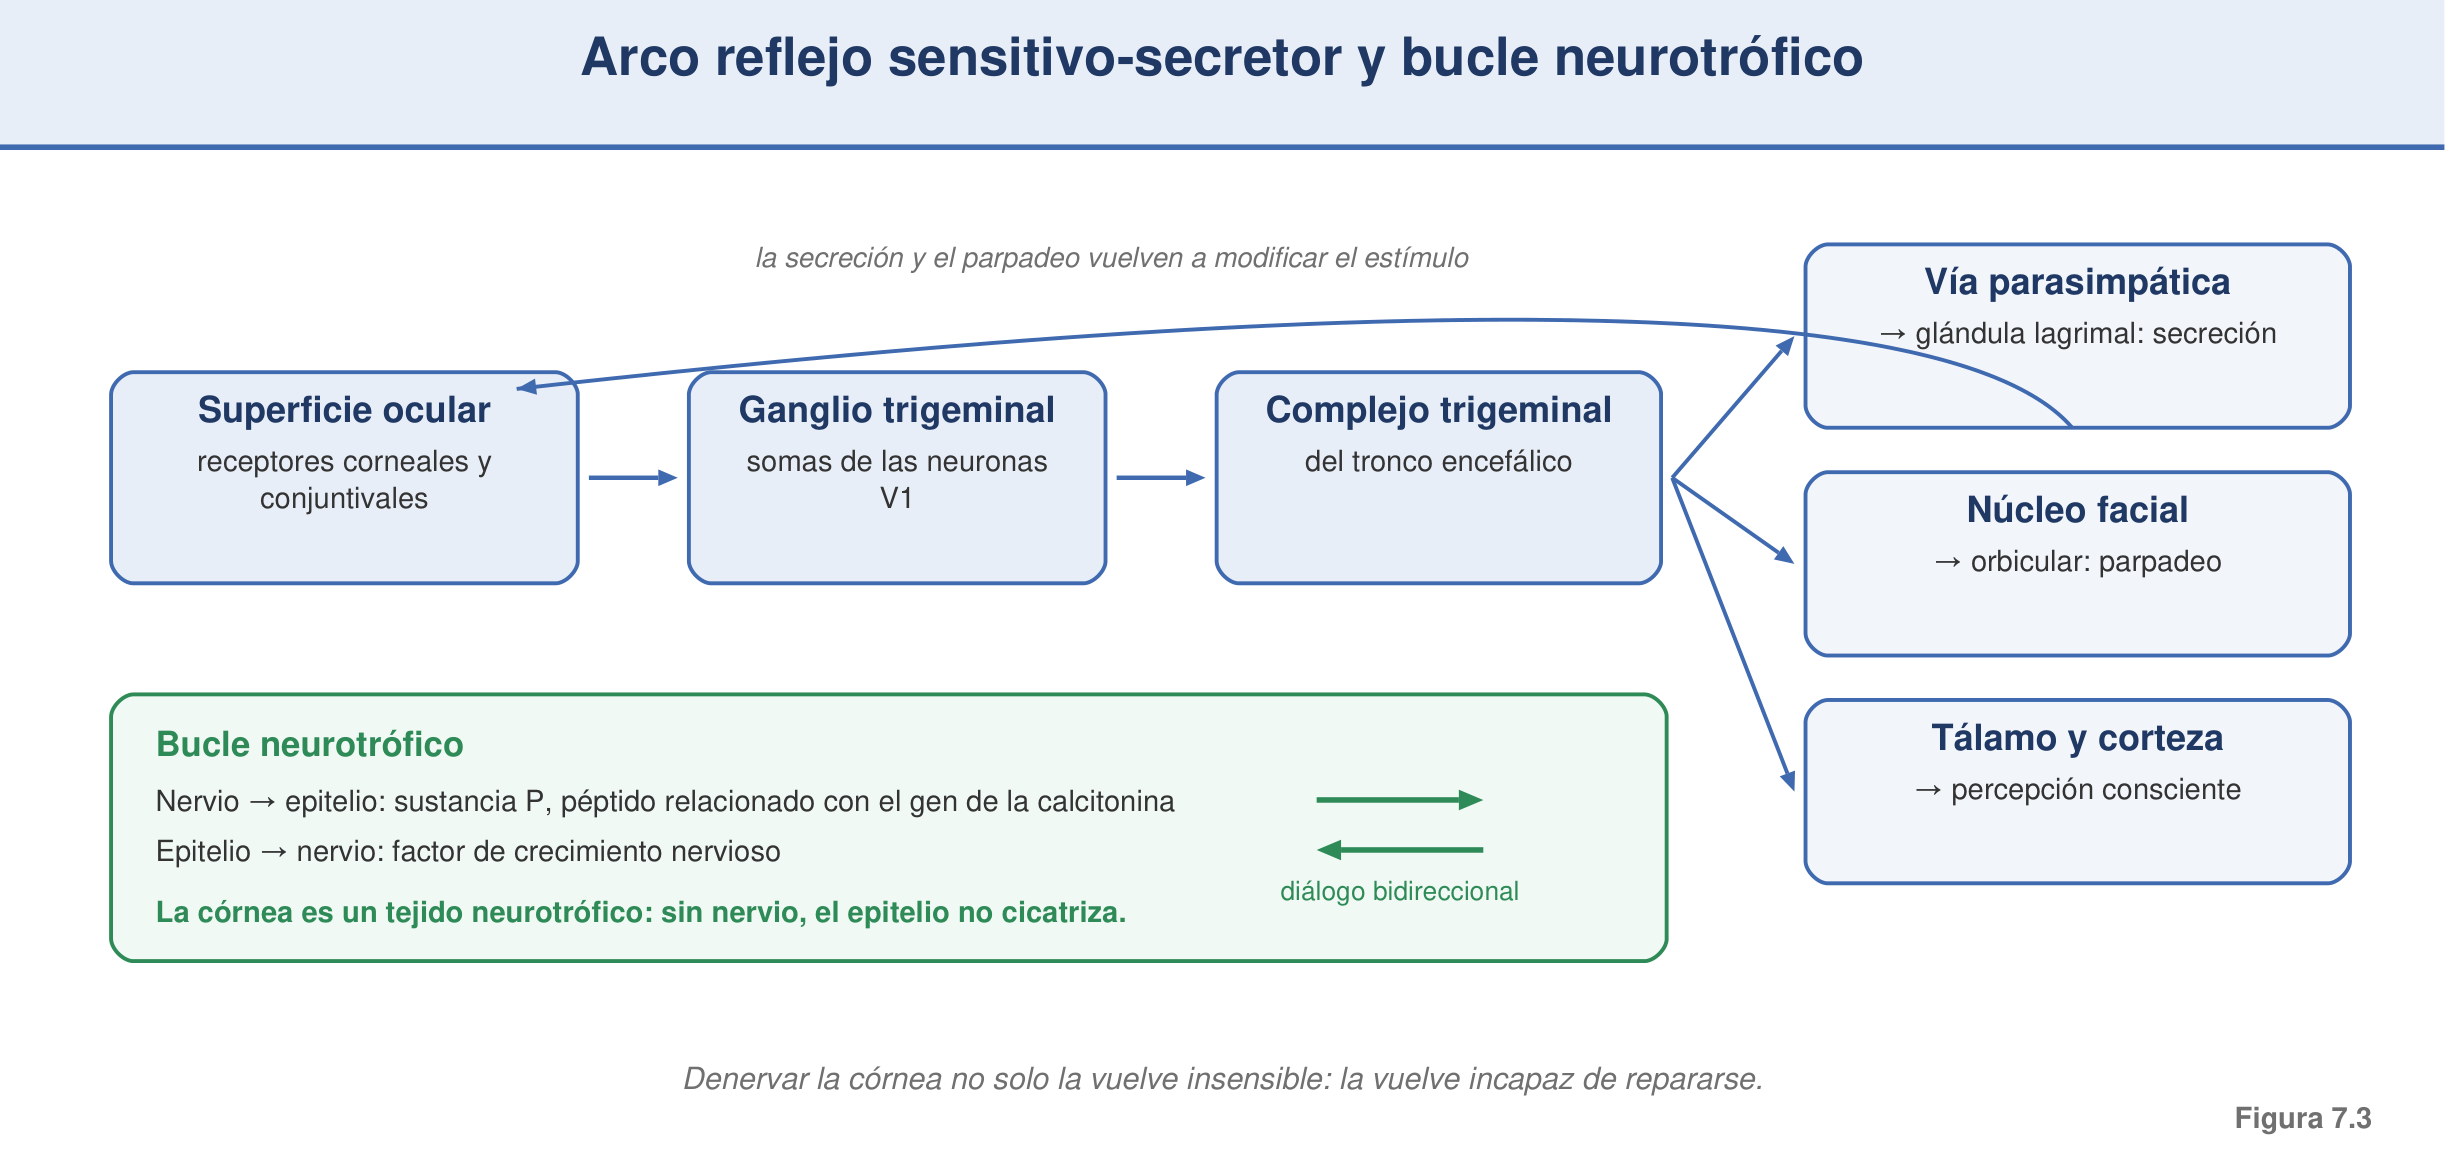
Sección titulada «7.4 El arco reflejo sensitivo-secretor y sensitivo-motor»La inervación sensitiva es el brazo aferente de los reflejos que regulan la superficie ocular. La vía aferente conduce las señales desde las terminaciones córneo-conjuntivales por los nervios ciliares y la rama oftálmica del trigémino hasta el ganglio trigeminal y el complejo sensitivo trigeminal del tronco encefálico.² Desde allí se activan dos reflejos fundamentales. El reflejo secretor lagrimal, sensitivo-secretor, activa la vía parasimpática eferente —del núcleo salivatorio superior al ganglio pterigopalatino— que aumenta la secreción acuosa de la glándula lagrimal, con un control simpático adicional; la regulación neural de la glándula lagrimal es el eje de este reflejo y su alteración es central en el ojo seco.¹⁷ El reflejo del parpadeo, sensitivo-motor, conduce la aferencia trigeminal a través de interneuronas del tronco hasta el núcleo del nervio facial y el músculo orbicular, cuyo parpadeo redistribuye la lágrima y protege la superficie.¹³
Un rasgo distintivo de este sistema es que el lagrimeo basal no requiere un estímulo nocivo: se mantiene por la descarga tónica de los termorreceptores de frío ante la evaporación, como se ha expuesto.¹¹ Las señales sensitivas, además de gobernar estos reflejos, se proyectan al tálamo y a la corteza somatosensorial, donde se genera la percepción consciente de las sensaciones oculares y su componente afectivo de incomodidad.² El conjunto configura la superficie ocular como una unidad funcional lagrimal —superficie sensitiva, glándulas e inervación aferente y eferente en un circuito de retroalimentación—, cuya descripción integradora se ofreció en el capítulo 1.¹⁷
7.5 Funciones tróficas de la inervación
Sección titulada «7.5 Funciones tróficas de la inervación»Además de generar sensaciones, los nervios corneales ejercen funciones tróficas esenciales para la integridad de la superficie. Mantienen la proliferación y la migración del epitelio, la cicatrización de las heridas y la homeostasis del tejido, de modo que la denervación produce la queratopatía neurotrófica, caracterizada por defectos epiteliales persistentes, úlceras y adelgazamiento corneal.¹⁸ Este diálogo entre el nervio y el epitelio es bidireccional y está mediado por neuropéptidos y factores de crecimiento liberados por las terminaciones y por el propio epitelio: la sustancia P, el péptido relacionado con el gen de la calcitonina y, de forma destacada, el factor de crecimiento nervioso.¹⁹
La sustancia P, en combinación con el factor de crecimiento similar a la insulina, promueve sinérgicamente la migración y la adhesión epiteliales, base de algunas terapias de la cicatrización corneal.¹⁹ El factor de crecimiento nervioso, por su parte, promueve la supervivencia y la regeneración de los nervios y el trofismo epitelial, y se sobreexpresa tras las heridas del epitelio; el tratamiento tópico con factor de crecimiento nervioso demostró cicatrizar úlceras neurotróficas, hallazgo que fundamentó el desarrollo de la cenegermina, factor de crecimiento nervioso humano recombinante aprobado para la queratitis neurotrófica.²⁰,²¹ Todo ello justifica el concepto de la córnea como tejido neurotrófico: existe una interdependencia trófica entre el nervio y el epitelio, de manera que la pérdida de una de las dos funciones deteriora la otra y cierra un círculo de denervación y daño epitelial que la enfermedad del ojo seco puede poner en marcha.¹⁸
7.6 Métodos de estudio de la inervación y la sensibilidad
Sección titulada «7.6 Métodos de estudio de la inervación y la sensibilidad»La exploración de la inervación de la superficie ocular dispone de dos grandes aproximaciones: la funcional, que mide la sensibilidad, y la morfológica, que visualiza los nervios. La estesiometría de contacto, mediante el estesiómetro de Cochet-Bonnet, emplea un filamento de nylon de 0,12 mm de diámetro y longitud regulable: cuanto mayor es la longitud extendida, menor es la presión que ejerce y mayor la sensibilidad que explora; el umbral es la longitud a la que el paciente detecta el toque. Es un método sencillo y de bajo coste, pero semicuantitativo, dependiente del observador y limitado al estímulo mecánico.²² La estesiometría de no contacto, con estesiómetros de chorro de aire o gas de temperatura y composición ajustables, permite evaluar de forma selectiva y graduada las submodalidades mecánica, química y térmica sin contacto, y es el método de referencia experimental para caracterizar los receptores.²
La aproximación morfológica se basa en la microscopía confocal in vivo, técnica no invasiva que visualiza el plexo subbasal y las células dendríticas y cuantifica la densidad, la longitud y la tortuosidad de las fibras nerviosas.²³ La densidad de fibras subbasales en la córnea central normal es del orden de 15-25 mm/mm², aunque los valores dependen del dispositivo y del programa de análisis empleados.²⁴ En la práctica, la morfología —la tortuosidad, la reflectividad, el arrosariamiento y la presencia de microneuromas— resulta más informativa que la densidad aislada, y la microscopía confocal se ha consolidado como un biomarcador de las neuropatías de la superficie ocular, incluida la diabética.²⁵,²³
7.7 Alteraciones neurosensoriales en el ojo seco
Sección titulada «7.7 Alteraciones neurosensoriales en el ojo seco»El ojo seco cursa con alteraciones neurosensoriales que pueden ir en dos direcciones opuestas. La hiposensibilidad resulta de la pérdida y el daño de las fibras, con reducción de la densidad y la ramificación del plexo subbasal, aumento de la tortuosidad y elevación de los umbrales sensitivos; es frecuente en el ojo seco crónico, la diabetes y la queratopatía neurotrófica.¹⁸ La hipersensibilidad o hiperexcitabilidad, por el contrario, se debe al aumento de la actividad y de la expresión de los canales de sodio, que genera descargas espontáneas de los termorreceptores de frío —percibidas como sensación de sequedad— y de los nociceptores, y que constituye la base del dolor neuropático corneal.⁷
Estas alteraciones explican uno de los fenómenos más desconcertantes del ojo seco: la disociación entre los signos y los síntomas. Algunos pacientes presentan síntomas desproporcionados a los signos —el dolor «sin tinción»— y otros, signos mayores que sus síntomas; ello se atribuye a la sensibilización periférica y central y al procesamiento nociplástico del dolor, un concepto que se desarrolla en el capítulo 25.⁷ La calidad de la sensación —dolor, sequedad o prurito— viene determinada por el equilibrio entre la inflamación y la lesión nerviosa.²⁶ Dos situaciones clínicas ilustran la vulnerabilidad de la inervación: la queratopatía neurotrófica, expresión extrema de la pérdida de función trófica, y la cirugía refractiva, que secciona el plexo subbasal —cuya regeneración es lenta e incompleta— y puede originar un ojo seco neuropático posrefractivo; tras el LASIK la sensibilidad suele recuperarse en seis a doce meses, pero una fracción de pacientes desarrolla síntomas persistentes, cuestión que se retoma en los capítulos 55 y 63.²⁷ El ojo seco es, en definitiva, también una enfermedad de los nervios de la superficie ocular, cuya desregulación sensitiva perpetúa el círculo vicioso.
Aplicación clínica
Sección titulada «Aplicación clínica»La neurofisiología de la superficie ocular tiene aplicaciones clínicas concretas. La medición de la sensibilidad corneal con el estesiómetro de Cochet-Bonnet, aunque sencilla, aporta información valiosa en el ojo seco, la queratopatía neurotrófica, el paciente diabético y el operado de cirugía refractiva, y ayuda a identificar la hiposensibilidad que agrava el daño epitelial. La microscopía confocal in vivo, allí donde está disponible, permite objetivar el estado de la inervación y detectar microneuromas en pacientes con dolor neuropático.
El reconocimiento del papel del TRPM8 como sensor de la evaporación ha abierto una vía terapéutica: los agonistas de los receptores de frío se investigan como estimulantes del lagrimeo. La comprensión de la función neurotrófica fundamenta el uso de la cenegermina en la queratopatía neurotrófica y el interés por el suero autólogo, rico en factores de crecimiento (capítulo 43). Un error clínico frecuente es interpretar el dolor desproporcionado a los signos como una exageración del paciente, cuando a menudo refleja una sensibilización neuronal real que requiere un abordaje específico. La exploración de la sensibilidad antes de la cirugía refractiva ayuda, por último, a identificar a los pacientes con mayor riesgo de ojo seco posoperatorio.
Controversias y lagunas de evidencia
Sección titulada «Controversias y lagunas de evidencia»La proporción clásica de 70/15/15 entre los tipos de receptores procede de la electrofisiología en modelos animales y su extrapolación exacta al ser humano no está plenamente establecida. Los valores de densidad de fibras subbasales obtenidos por microscopía confocal dependen fuertemente del dispositivo y del programa de análisis, lo que dificulta comparar estudios y definir la normalidad. La relación entre los hallazgos morfológicos —densidad, tortuosidad, microneuromas— y los síntomas del paciente es imperfecta, y el sustrato preciso de la disociación entre signos y síntomas sigue siendo objeto de investigación. Por último, la eficacia clínica de las estrategias que actúan sobre los canales de transducción, como los agonistas de TRPM8, se encuentra todavía en fase de evaluación.
Puntos clave
Sección titulada «Puntos clave»- La córnea es el tejido más densamente inervado del organismo; su inervación procede de la rama oftálmica del trigémino y forma un plexo subbasal con un vórtice inferonasal.
- Existen tres tipos de receptores sensitivos: nociceptores polimodales (~70 %), mecanonociceptores puros (~15-20 %) y termorreceptores de frío (~10-15 %).
- El canal TRPM8 de los termorreceptores de frío detecta la evaporación de la lágrima y sostiene el lagrimeo y el parpadeo basales; es el sensor de humedad de la superficie.
- La inervación es el brazo aferente de los reflejos secretor lagrimal y del parpadeo, y proyecta a la corteza la percepción consciente de las sensaciones oculares.
- Los nervios corneales ejercen funciones tróficas mediante sustancia P, CGRP y factor de crecimiento nervioso; su pérdida produce queratopatía neurotrófica.
- La cenegermina, factor de crecimiento nervioso humano recombinante, es la expresión terapéutica del concepto de córnea como tejido neurotrófico.
- La sensibilidad se explora con el estesiómetro de Cochet-Bonnet y la morfología nerviosa con microscopía confocal in vivo.
- El ojo seco cursa con hiposensibilidad o con hipersensibilidad; esta última fundamenta el dolor neuropático corneal y la disociación entre signos y síntomas.
Conclusiones
Sección titulada «Conclusiones»La inervación de la superficie ocular integra tres funciones inseparables: sentir, regular y nutrir. Siente a través de una densidad de receptores sin parangón en el organismo; regula la secreción lagrimal y el parpadeo mediante un arco reflejo cuyo sensor de humedad es el canal TRPM8; y nutre el epitelio mediante una acción trófica cuya pérdida conduce a la queratopatía neurotrófica. Esta triple función explica por qué el ojo seco es también, y de manera esencial, una enfermedad de los nervios de la superficie ocular. La desregulación sensitiva —tanto por defecto como por exceso— perpetúa el círculo vicioso, genera dolor y disocia los síntomas de los signos, y abre vías terapéuticas que van de los agonistas de los receptores de frío a los factores neurotróficos. Con la dimensión neural aquí descrita se completa el estudio de la unidad funcional lagrimal, y la obra queda preparada para abordar, en las secciones siguientes, la definición, la clasificación y la fisiopatología de la enfermedad.
Bibliografía
Sección titulada «Bibliografía»-
Müller LJ, Marfurt CF, Kruse F, Tervo TM. Corneal nerves: structure, contents and function. Exp Eye Res. 2003;76(5):521-542. PMID: 12697417 · DOI: 10.1016/s0014-4835(03)00050-2
-
Belmonte C, Nichols JJ, Cox SM, Brock JA, Begley CG, Bereiter DA, et al. TFOS DEWS II pain and sensation report. Ocul Surf. 2017;15(3):404-437. PMID: 28736339 · DOI: 10.1016/j.jtos.2017.05.002
-
Marfurt CF, Kingsley RE, Echtenkamp SE. Sensory and sympathetic innervation of the mammalian cornea. A retrograde tracing study. Invest Ophthalmol Vis Sci. 1989;30(3):461-472. PMID: 2494126
-
Marfurt CF, Cox J, Deek S, Dvorscak L. Anatomy of the human corneal innervation. Exp Eye Res. 2010;90(4):478-492. PMID: 20036654 · DOI: 10.1016/j.exer.2009.12.010
-
Müller LJ, Vrensen GF, Pels L, Cardozo BN, Willekens B. Architecture of human corneal nerves. Invest Ophthalmol Vis Sci. 1997;38(5):985-994. PMID: 9112994
-
He J, Bazan NG, Bazan HE. Mapping the entire human corneal nerve architecture. Exp Eye Res. 2010;91(4):513-523. PMID: 20650270 · DOI: 10.1016/j.exer.2010.07.007
-
Stapleton F, Argüeso P, Asbell P, Azar D, Bosworth C, Chen W, et al. TFOS DEWS III: Digest. Am J Ophthalmol. 2025;279:451-553. Corrigendum en: Am J Ophthalmol. 2026;288:350-1. PMID: 40472874 · DOI: 10.1016/j.ajo.2025.05.040
-
Belmonte C, Acosta MC, Gallar J. Neural basis of sensation in intact and injured corneas. Exp Eye Res. 2004;78(3):513-525. PMID: 15106930 · DOI: 10.1016/j.exer.2003.09.023
-
Gallar J, Pozo MA, Tuckett RP, Belmonte C. Response of sensory units with unmyelinated fibres to mechanical, thermal and chemical stimulation of the cat’s cornea. J Physiol. 1993;468:609-622. PMID: 8254527 · DOI: 10.1113/jphysiol.1993.sp019791
-
González-González O, Bech F, Gallar J, Merayo-Lloves J, Belmonte C. Functional properties of sensory nerve terminals of the mouse cornea. Invest Ophthalmol Vis Sci. 2017;58(1):404-415. PMID: 28118665 · DOI: 10.1167/iovs.16-20033
-
Parra A, Madrid R, Echevarria D, del Olmo S, Morenilla-Palao C, Acosta MC, et al. Ocular surface wetness is regulated by TRPM8-dependent cold thermoreceptors of the cornea. Nat Med. 2010;16(12):1396-1399. PMID: 21076394 · DOI: 10.1038/nm.2264
-
McKemy DD, Neuhausser WM, Julius D. Identification of a cold receptor reveals a general role for TRP channels in thermosensation. Nature. 2002;416(6876):52-58. PMID: 11882888 · DOI: 10.1038/nature719
-
Quallo T, Vastani N, Horridge E, Gentry C, Parra A, Moss S, et al. TRPM8 is a neuronal osmosensor that regulates eye blinking in mice. Nat Commun. 2015;6:7150. PMID: 25998021 · DOI: 10.1038/ncomms8150
-
Alcalde I, Íñigo-Portugués A, González-González O, Almaraz L, Artime E, Morenilla-Palao C, et al. Morphological and functional changes in TRPM8-expressing corneal cold thermoreceptor neurons during aging and their impact on tearing in mice. J Comp Neurol. 2018;526(11):1859-1874. PMID: 29664111 · DOI: 10.1002/cne.24454
-
Fakih D, Migeon T, Moreau N, Baudouin C, Réaux-Le Goazigo A, Mélik Parsadaniantz S. Transient receptor potential channels: important players in ocular pain and dry eye disease. Pharmaceutics. 2022;14(9):1859. PMID: 36145607 · DOI: 10.3390/pharmaceutics14091859
-
Coste B, Mathur J, Schmidt M, Earley TJ, Ranade S, Petrus MJ, et al. Piezo1 and Piezo2 are essential components of distinct mechanically activated cation channels. Science. 2010;330(6000):55-60. PMID: 20813920 · DOI: 10.1126/science.1193270
-
Dartt DA. Neural regulation of lacrimal gland secretory processes: relevance in dry eye diseases. Prog Retin Eye Res. 2009;28(3):155-177. PMID: 19376264 · DOI: 10.1016/j.preteyeres.2009.04.003
-
Dua HS, Said DG, Messmer EM, Rolando M, Benitez-Del-Castillo JM, Hossain PN, et al. Neurotrophic keratopathy. Prog Retin Eye Res. 2018;66:107-131. PMID: 29698813 · DOI: 10.1016/j.preteyeres.2018.04.003
-
Nishida T. Translational research in corneal epithelial wound healing. Eye Contact Lens. 2010;36(5):300-304. PMID: 20724848 · DOI: 10.1097/ICL.0b013e3181f016d0
-
Lambiase A, Rama P, Bonini S, Caprioglio G, Aloe L. Topical treatment with nerve growth factor for corneal neurotrophic ulcers. N Engl J Med. 1998;338(17):1174-1180. PMID: 9554857 · DOI: 10.1056/NEJM199804233381702
-
Deeks ED, Lamb YN. Cenegermin: a review in neurotrophic keratitis. Drugs. 2020;80(5):489-494. PMID: 32185680 · DOI: 10.1007/s40265-020-01289-w
-
Wolffsohn JS, Benítez-Del-Castillo JM, Loya-Garcia D, Inomata T, Iyer G, Liang L, et al. TFOS DEWS III: Diagnostic Methodology. Am J Ophthalmol. 2025;279:387-450. PMID: 40451408 · DOI: 10.1016/j.ajo.2025.05.033
-
Cruzat A, Qazi Y, Hamrah P. In vivo confocal microscopy of corneal nerves in health and disease. Ocul Surf. 2017;15(1):15-47. PMID: 27771327 · DOI: 10.1016/j.jtos.2016.09.004
-
Patel DV, Tavakoli M, Craig JP, Efron N, McGhee CN. Corneal sensitivity and slit scanning in vivo confocal microscopy of the subbasal nerve plexus of the normal central and peripheral human cornea. Cornea. 2009;28(7):735-740. PMID: 19574916 · DOI: 10.1097/ICO.0b013e318193e0e3
-
Oliveira-Soto L, Efron N. Morphology of corneal nerves using confocal microscopy. Cornea. 2001;20(4):374-384. PMID: 11333324 · DOI: 10.1097/00003226-200105000-00008
-
Belmonte C. Pain, dryness, and itch sensations in eye surface disorders are defined by a balance between inflammation and sensory nerve injury. Cornea. 2019;38(Suppl 1):S11-S24. PMID: 31490785 · DOI: 10.1097/ICO.0000000000002116
-
Chao C, Golebiowski B, Stapleton F. The role of corneal innervation in LASIK-induced neuropathic dry eye. Ocul Surf. 2014;12(1):32-45. PMID: 24439045 · DOI: 10.1016/j.jtos.2013.09.001